
禽流感新变异:H6亚型病毒重配G57基因型H9N2内部基因,小鼠高致病性引关注
本文是对2026年发表于《Emerg Microbes Infect》的一项临床前研究的解读,属科研资讯分享,不构成任何诊疗建议。这活儿干得挺漂亮——从鸡场里捞出来六个H6重组病毒,一看内部基因全是G57型H9N2的底子,还捎带手把H5N1和鸭源的片段拼了进来。最扎眼的是,这些病毒在小鼠身上致死率飙到75%甚至100%,而且压根儿不用适应。搞禽流感的同行都该瞅一眼,这玩意儿离咱们可能比想象中近。
期刊:Emerging Microbes & Infections(IF: 7.0,Q1)
发表时间:2026年12月
原文标题:Novel emerging reassortant H6 avian influenza viruses with internal genes from G57 genotype of H9N2 pose potential zoonotic risk.
翻译标题:禽流感新变异:H6亚型病毒重配G57基因型H9N2内部基因,小鼠高致病性引关注
研究设计:观察性研究:病毒分离、遗传特征分析、体外实验及体内动物攻毒实验
样本量:6株H6分离株(5株H6N1、1株H6N2);小鼠实验每组11只;鸡实验每组6只感染+4只接触
主要结局:H6分离株在小鼠中高致病性(NJ2501致100%死亡),鸡群中经直接接触高效传播
全文技术路线图
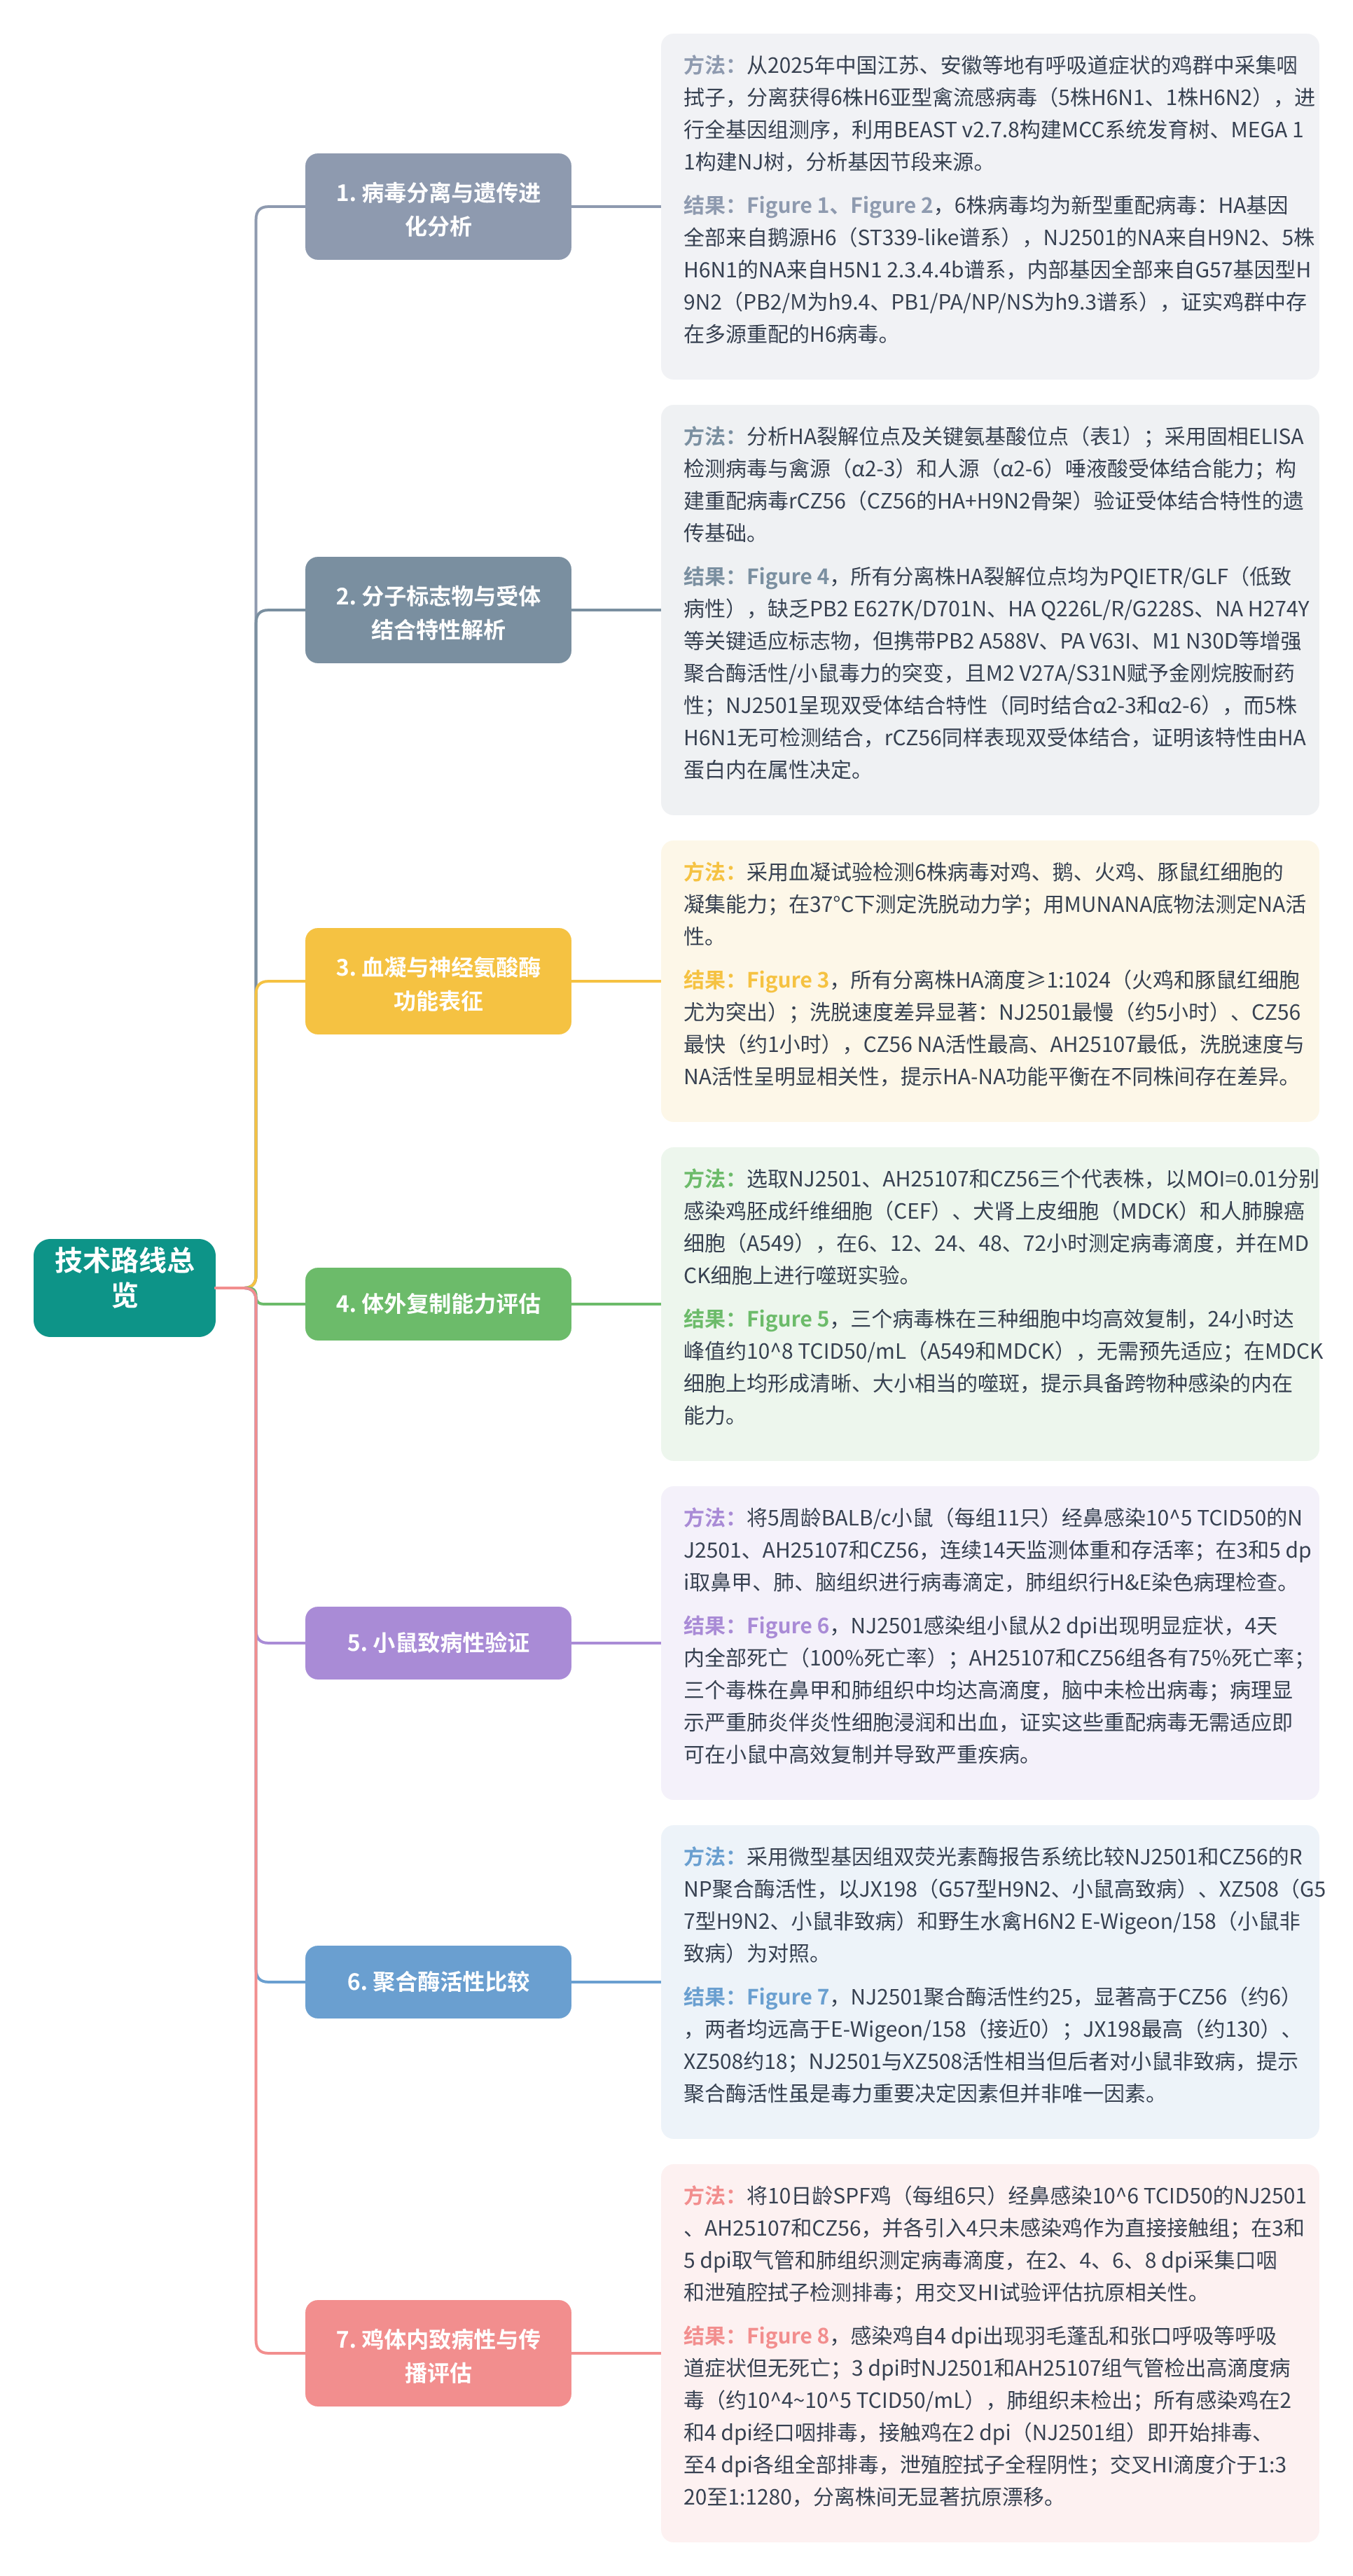
01 研究背景与科学问题
禽流感病毒(AIV)的跨种传播风险始终是公共卫生领域的焦点。H9N2亚型AIV因其内部基因(PB2、PB1、PA、NP、M、NS)频繁参与与其他亚型的重配,被视作“基因供体库”,其G57基因型已成为中国家禽中的优势流行株 [Introduction]。与此同时,H6亚型AIV在全球水禽和家禽中广泛流行,并已多次报道可感染哺乳动物(包括猪和人类),但其致病性通常较低。
本研究提出一个关键科学问题:当H6亚型的表面基因(HA和NA)与G57基因型H9N2的内部基因发生重配后,会产生怎样的生物学特性?这种新型重配病毒是否获得了更强的哺乳动物致病性和禽间传播能力?作者通过对2025年中国鸡群中分离的6株H6病毒进行系统表征,试图回答这一问题 [Introduction]。
02 数据来源与研究方法
研究团队从中国不同地区(江苏、安徽等地)有呼吸道症状的鸡群中分离获得6株H6亚型AIV,包括5株H6N1(CZ56、CZ57、CZ58、CZ511、AH25107)和1株H6N2(NJ2501)[Materials and methods]。
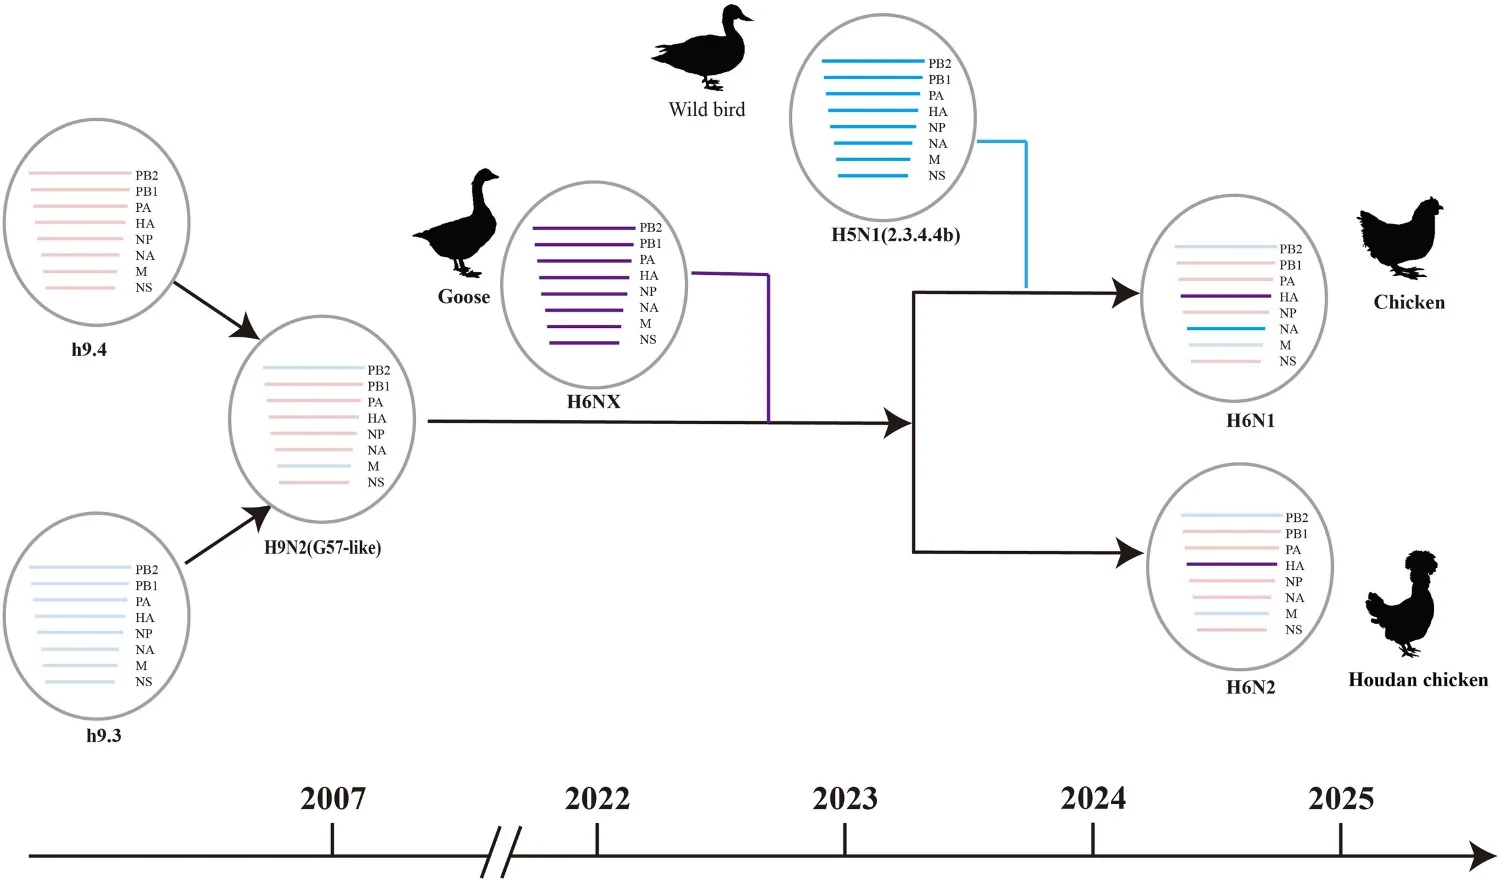
Figure 2. 这张示意图用色块清晰展示了6株H6分离株8个基因节段的来源:HA来自鹅源H6,NA来自H5N1或H9N2,内部基因全部来自G57基因型H9N2。读图时注意每个色块对应的供体病毒,箭头表示基因流动方向。核心信息是这些病毒是多源重配的产物,内部基因骨架为G57 H9N2。该图直观呈现了重配事件,为后续功能实验提供了遗传学基础。
方法学上采用了多维度的分析策略:
- 遗传进化分析:利用BEAST v2.7.8进行贝叶斯系统发育分析(MCC树),MEGA 11构建NJ树 [Methods]
- 受体结合特性:固相ELISA法检测病毒与禽类(α2-3)和人类(α2-6)唾液酸受体的结合能力 [Fig 4]
- 体外复制能力:在CEF、MDCK、A549细胞中测定生长曲线(MOI=0.01)[Fig 5]
- 体内致病性:5周龄BALB/c小鼠经鼻感染10^5 TCID50,观察14天;10日龄SPF鸡感染10^6 TCID50并设直接接触组 [Fig 6, Fig 8]
- 聚合酶活性:双荧光素酶微型基因组报告系统 [Fig 7]
统计采用GraphPad 8双因素方差分析,p<0.05为显著 [Methods]。
03 研究结果:从重配起源到跨种致病性的系统解析
本研究围绕“新型重配H6病毒是否构成潜在威胁”这一主线,从遗传起源、分子标记、受体结合、体外复制、小鼠致病性、聚合酶活性及鸡群传播七个维度层层递进,构建了一条完整的证据链。以下为各维度核心发现。
板块1|Genetic characterization reveals that all six H6 isolates are novel reassortants with surface genes from goose-origin H6 and H5N1/H9N2, and internal genes from G57 genotype H9N2
结果1|六株H6分离株均为新型重组病毒,表面基因源自鹅源H6与H5N1/H9N2,内部基因全部来自G57基因型H9N2。作者对2025年从中国鸡群中分离的6株H6亚型禽流感病毒(5株H6N1:CZ56、CZ57、CZ58、CZ511、AH25107;1株H6N2:NJ2501)进行了全基因组测序与系统发育分析。结果显示,所有6株病毒的HA基因均聚类于ST339-like谱系,源自中国家鹅中流行的H6N2病毒;NJ2501的NA基因来自H9N2病毒,而5株H6N1的NA基因则来自H5N1 2.3.4.4b谱系。内部基因方面,PB2和M基因属于h9.4(G1-like)谱系,PB1、PA、NP和NS基因属于h9.3(BJ/94-like)谱系,两者共同构成G57基因型H9N2的典型骨架。这一多源重配模式表明,鸡群中的H6病毒通过复杂的基因交换事件获得了新的遗传组合,其表面基因与内部基因分别来自不同宿主来源的病毒谱系,提示家禽中H6病毒的遗传多样性正在增加。
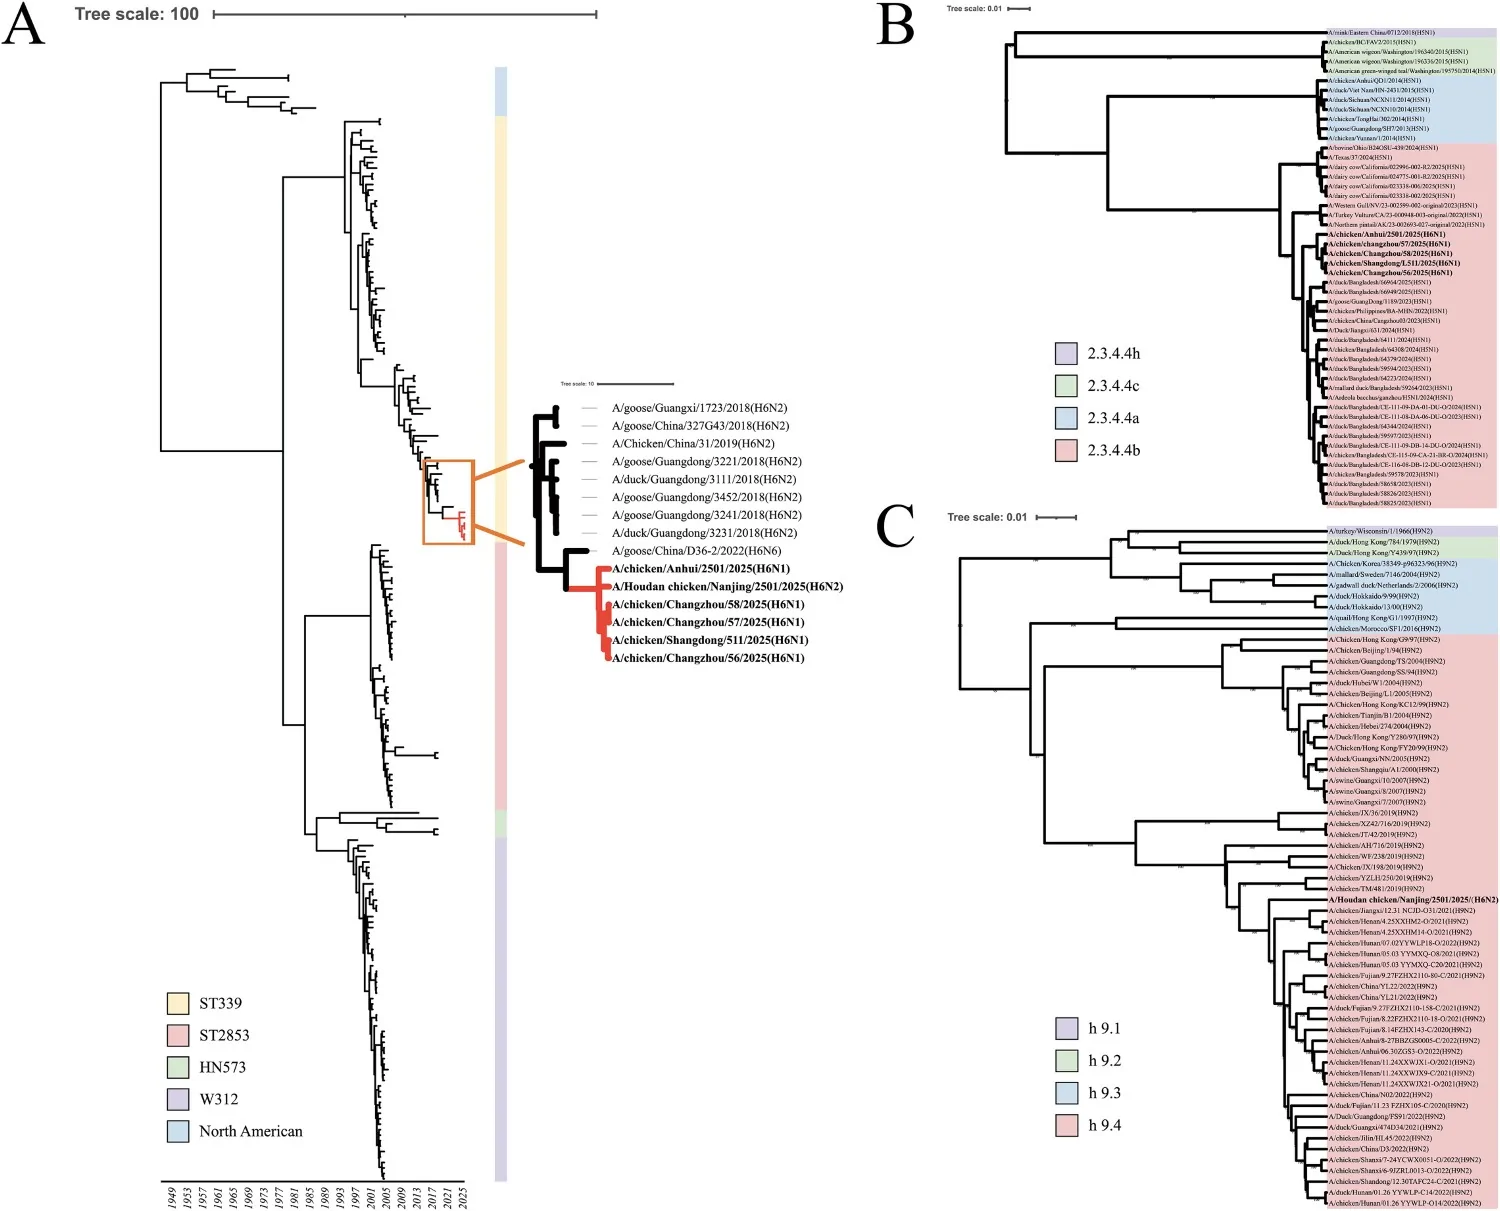
Figure 1. 三棵MCC系统发育树分别展示HA(H6)、N1和N2基因的进化关系。读图时关注6株分离株(加粗)在树中的位置:HA基因聚类于ST339-like谱系(鹅源H6N2),N1基因聚类于H5N1 2.3.4.4b谱系,N2基因聚类于H9N2病毒。核心信息是表面基因的多源起源,为结果1的重配结论提供了直接证据。
结果2|所有H6分离株均为低致病性禽流感病毒,HA裂解位点为PQIETR/GLF,且缺乏关键哺乳动物适应标志物。通过氨基酸序列分析,作者确认6株H6分离株的HA裂解位点均为PQIETR/GLF,符合低致病性禽流感病毒的分子特征。进一步的关键位点筛查显示,这些病毒均缺乏PB2 E627K和D701N突变(与哺乳动物适应相关)、HA Q226L/R和G228S突变(与人型受体结合相关)以及NA H274Y突变(与奥司他韦耐药相关)。然而,作者在表1中同时发现这些病毒携带了多个与聚合酶活性增强和小鼠毒力增加相关的突变(如PB2 A588V、PB1 D3V、PA V63I、M1 N30D、NS1 C138F),且M2蛋白存在V27A和S31N突变,赋予金刚烷胺耐药性。这一分子特征组合表明,尽管这些病毒表面呈现低致病性表型,但其内部基因携带的适应性突变可能为后续在哺乳动物中的复制和致病性奠定了基础,与结果1中确认的G57基因型H9N2内部基因骨架相呼应。
板块2|Functional characterization of HA and NA shows high hemagglutination titers, variable elution kinetics correlating with NA activity, and dual receptor binding in the H6N2 isolate NJ2501
结果3|H6分离株对多种红细胞呈现高血凝滴度,但洗脱动力学各异且与NA活性相关
作者通过血凝试验评估了6株H6分离株(5株H6N1和1株H6N2)的血凝能力,使用鸡、鹅、火鸡和豚鼠红细胞进行检测。结果显示所有分离株均表现出高血凝滴度(HA滴度≥1:1024),其中以火鸡和豚鼠红细胞检测到的滴度尤为突出,提示这些病毒具有广泛的受体结合能力。进一步通过37°C下的洗脱动力学实验发现,各分离株的洗脱速度差异显著:NJ2501洗脱最慢(约5小时),AH25107约3小时,CZ57/CZ58/CZ511约2小时,而CZ56最快(约1小时)。与此对应,MUNANA底物法测定的NA活性显示CZ56活性最高,AH25107最低,洗脱速度与NA活性呈明显相关性。这一结果表明HA与NA之间的功能平衡在不同分离株间存在差异,可能影响病毒与受体的结合稳定性及后续的复制效率。
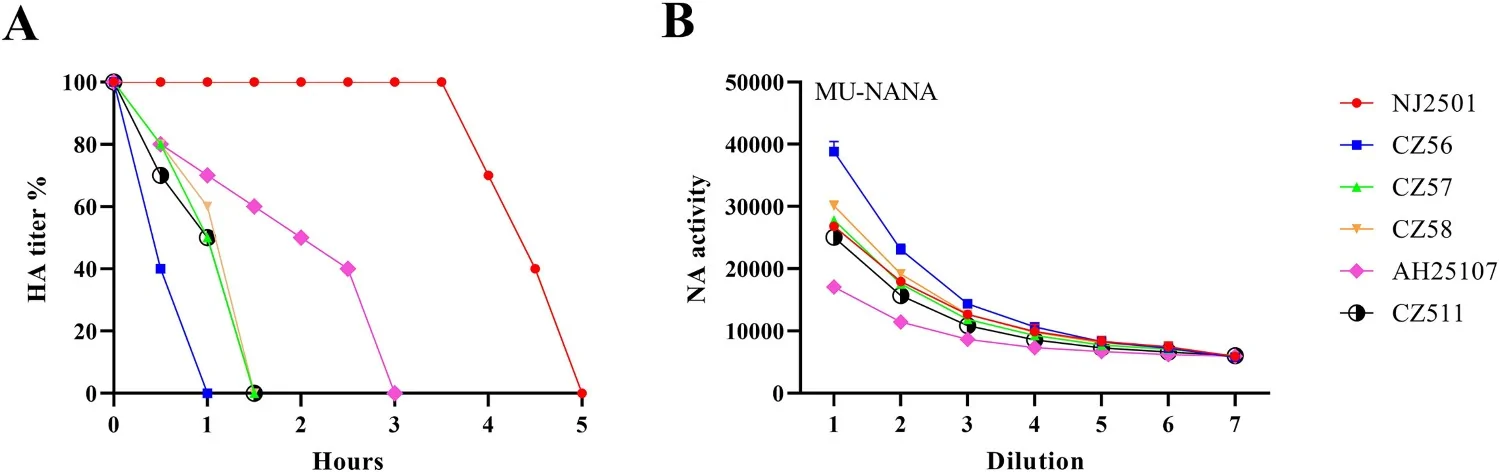
Figure 3. 图A为洗脱动力学曲线,图B为NA活性测定。读图时看曲线下降速度:NJ2501洗脱最慢(约5小时),CZ56最快(约1小时),与NA活性(CZ56最高、AH25107最低)呈正相关。核心信息是HA与NA的功能平衡在不同分离株间存在差异,可能影响病毒复制效率。该图支撑结果3的结论。
结果4|H6N2分离株NJ2501呈现双受体结合特性(禽源与人源),而H6N1分离株无可检测结合;重配病毒rCZ56证实该特性源于HA蛋白本身
为评估这些H6分离株的受体结合特异性,作者采用直接固相结合试验,以禽源受体类似物(3'SLN,α2-3)和人源受体类似物(6'SLN,α2-6)分别检测各病毒的受体结合谱。结果显示,H6N2分离株NJ2501能够同时结合禽源和人源两类受体,呈现双受体结合特性;而5株H6N1分离株对两类受体均无可检测的结合信号。作为对照,H5N1病毒仅结合禽源受体,H1N1病毒仅结合人源受体。为探究NJ2501双受体结合特性的遗传基础,作者构建了以CZ56的HA基因替换到H9N2骨架上的重配病毒rCZ56,结果发现rCZ56同样表现出双受体结合能力,而CZ56原始病毒却无可检测结合,这有力地证明双受体结合特性是由HA蛋白本身的内在属性决定的,而非NA或其他内部基因所介导。这一发现提示NJ2501可能具有跨物种传播的潜在风险,值得密切关注。
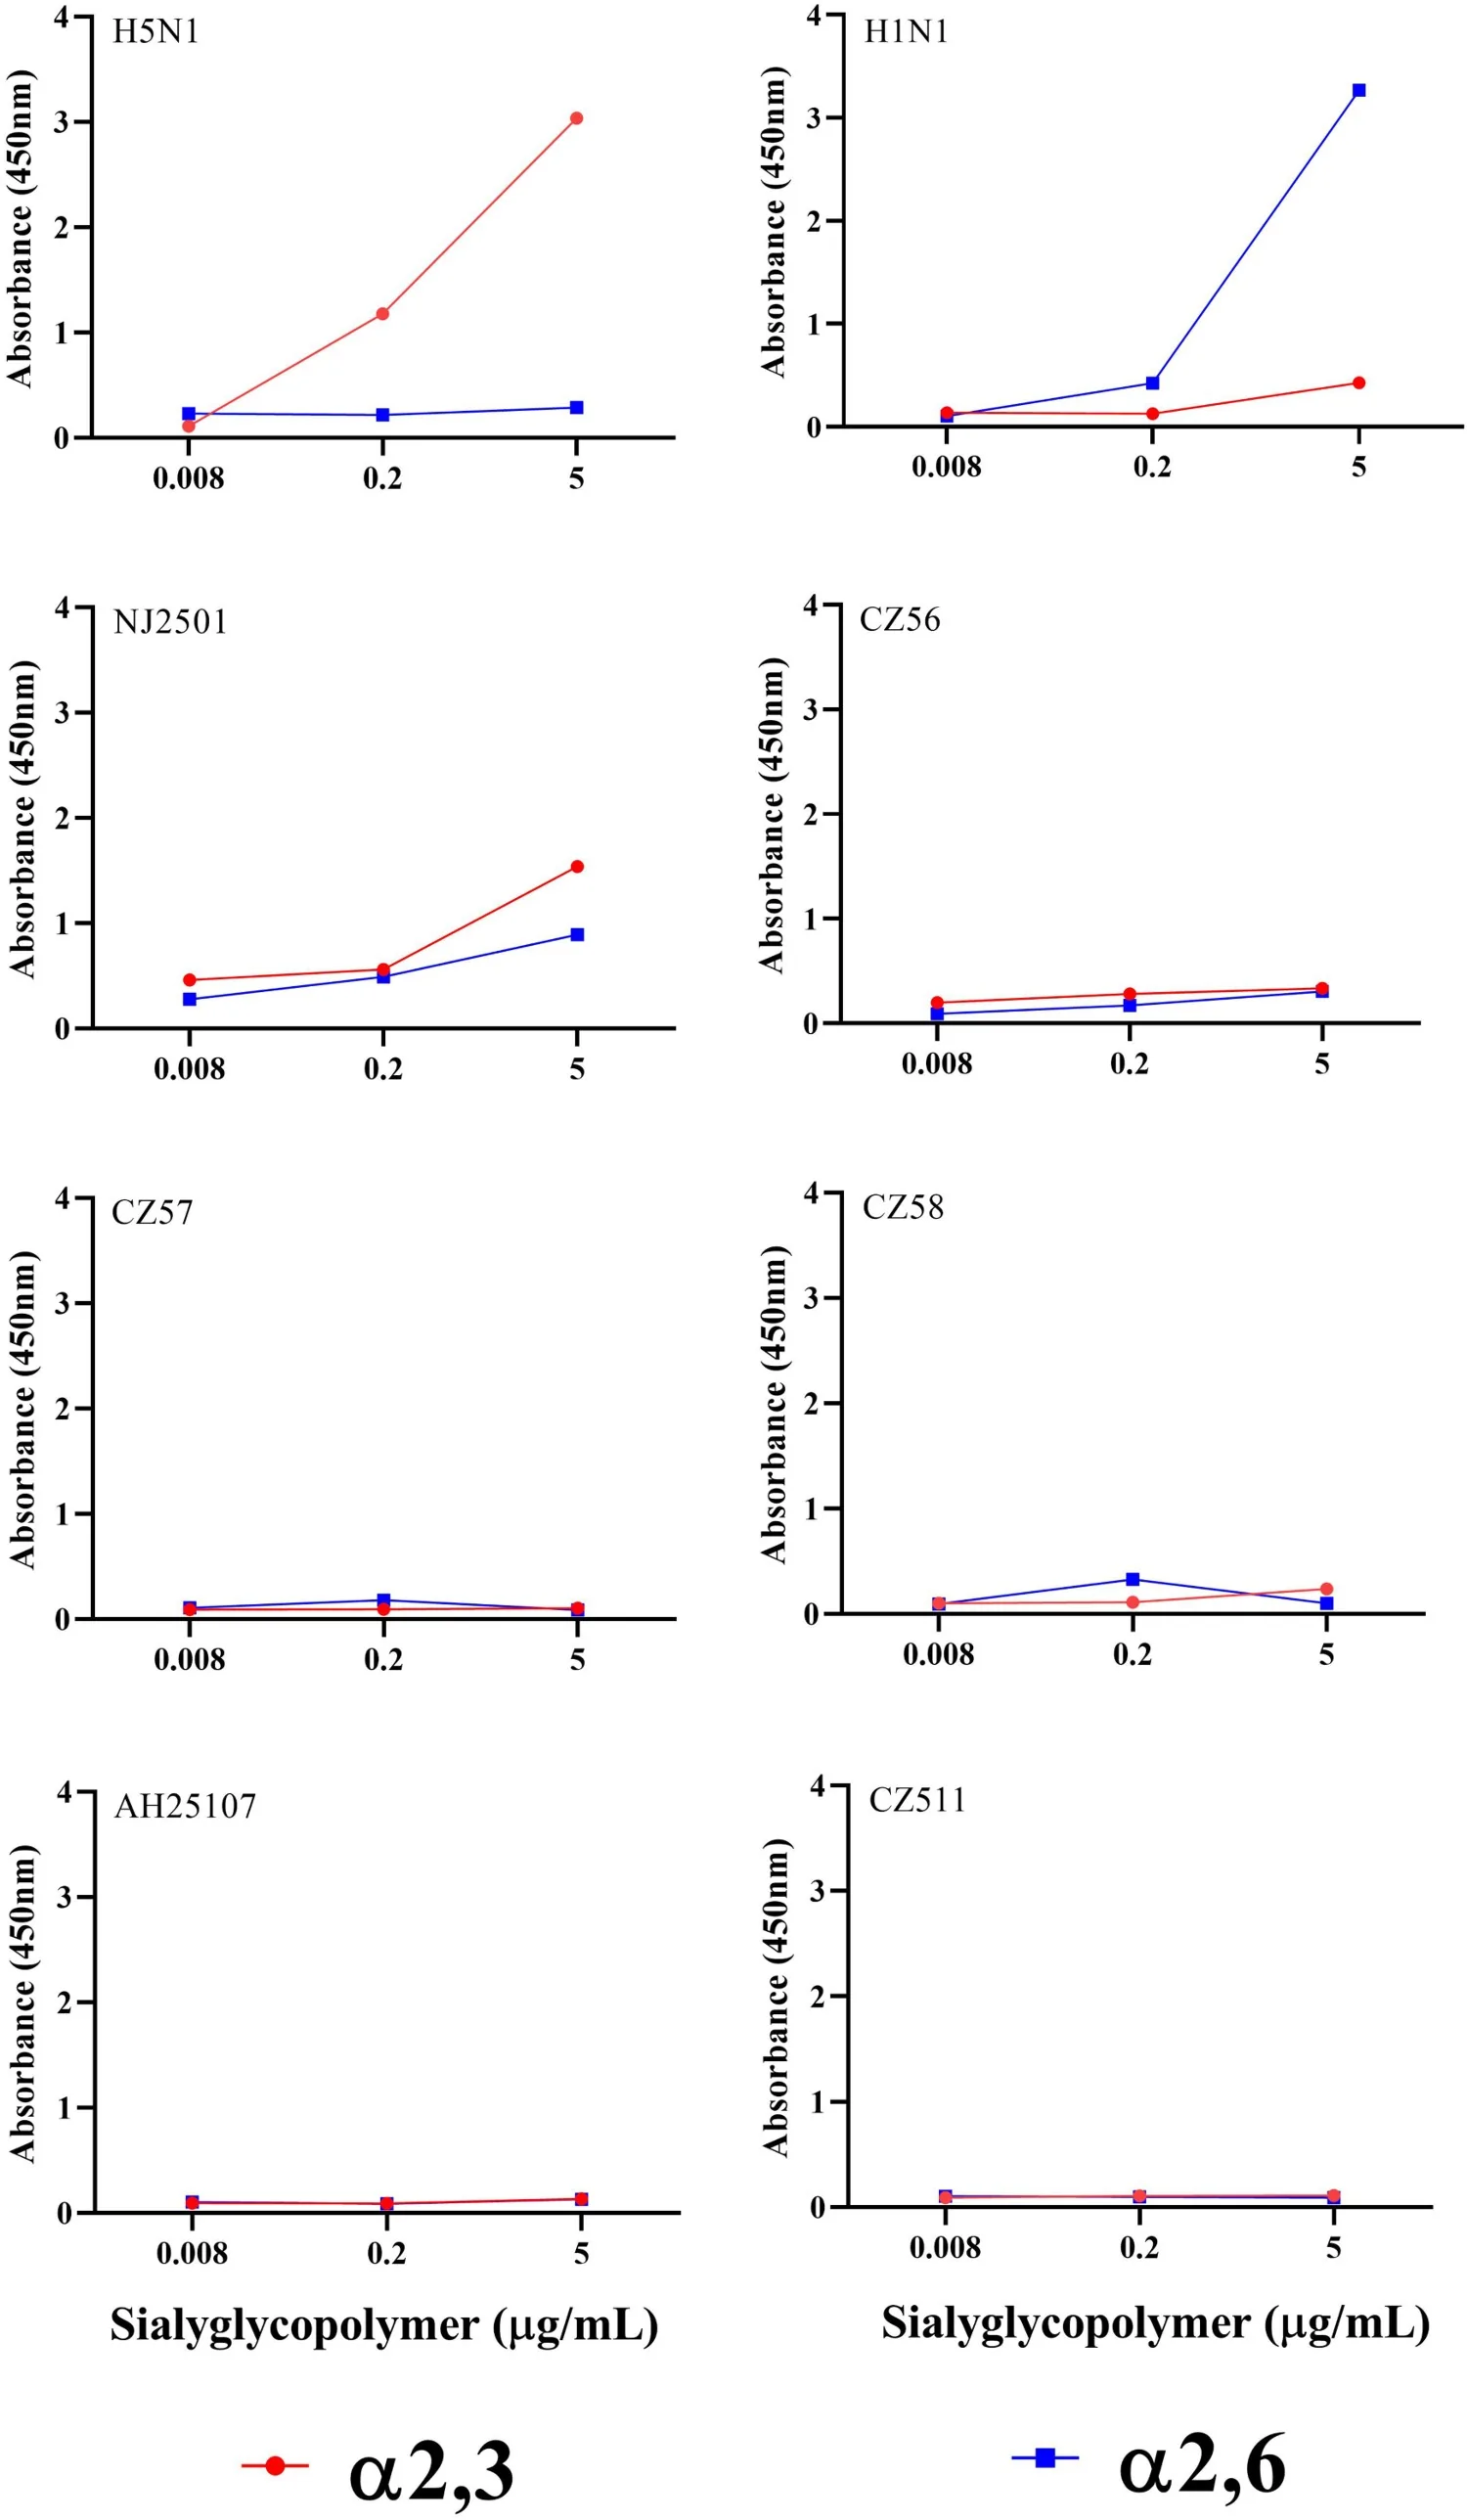
Figure 4. 图为固相ELISA结合曲线,红色代表禽源受体(α2-3),蓝色代表人源受体(α2-6)。读图时看各病毒对两种受体的结合强度:NJ2501同时结合两种受体(双受体结合),而5株H6N1均无可检测结合。核心信息是NJ2501的双受体结合特性可能增加其跨种传播风险,该图直接支撑结果4。
板块3|In vitro and in vivo studies demonstrate efficient replication in avian and mammalian cells, high pathogenicity in mice, and elevated polymerase activity of the H6 isolates
结果5|H6分离株无需适应即可在禽源和哺乳动物细胞中高效复制
为评估这些H6病毒跨物种传播的潜力,作者选取NJ2501、AH25107和CZ56三个代表株,以0.01的感染复数(MOI)分别感染鸡胚成纤维细胞(CEF)、犬肾上皮细胞(MDCK)和人肺腺癌细胞(A549),并在6、12、24、48和72小时测定病毒滴度。结果显示,三个病毒株在三种细胞中均能高效复制,在24小时达到峰值约10^8 TCID50/mL(A549和MDCK细胞),且无需任何预先适应;在MDCK细胞上均形成清晰、大小相当的噬斑。这一结果与前述受体结合特性形成呼应——尽管H6N1分离株在体外未检出受体结合,但它们在哺乳动物细胞中的高效复制提示其具备跨物种感染的内在能力,为后续小鼠致病性实验提供了体外依据。
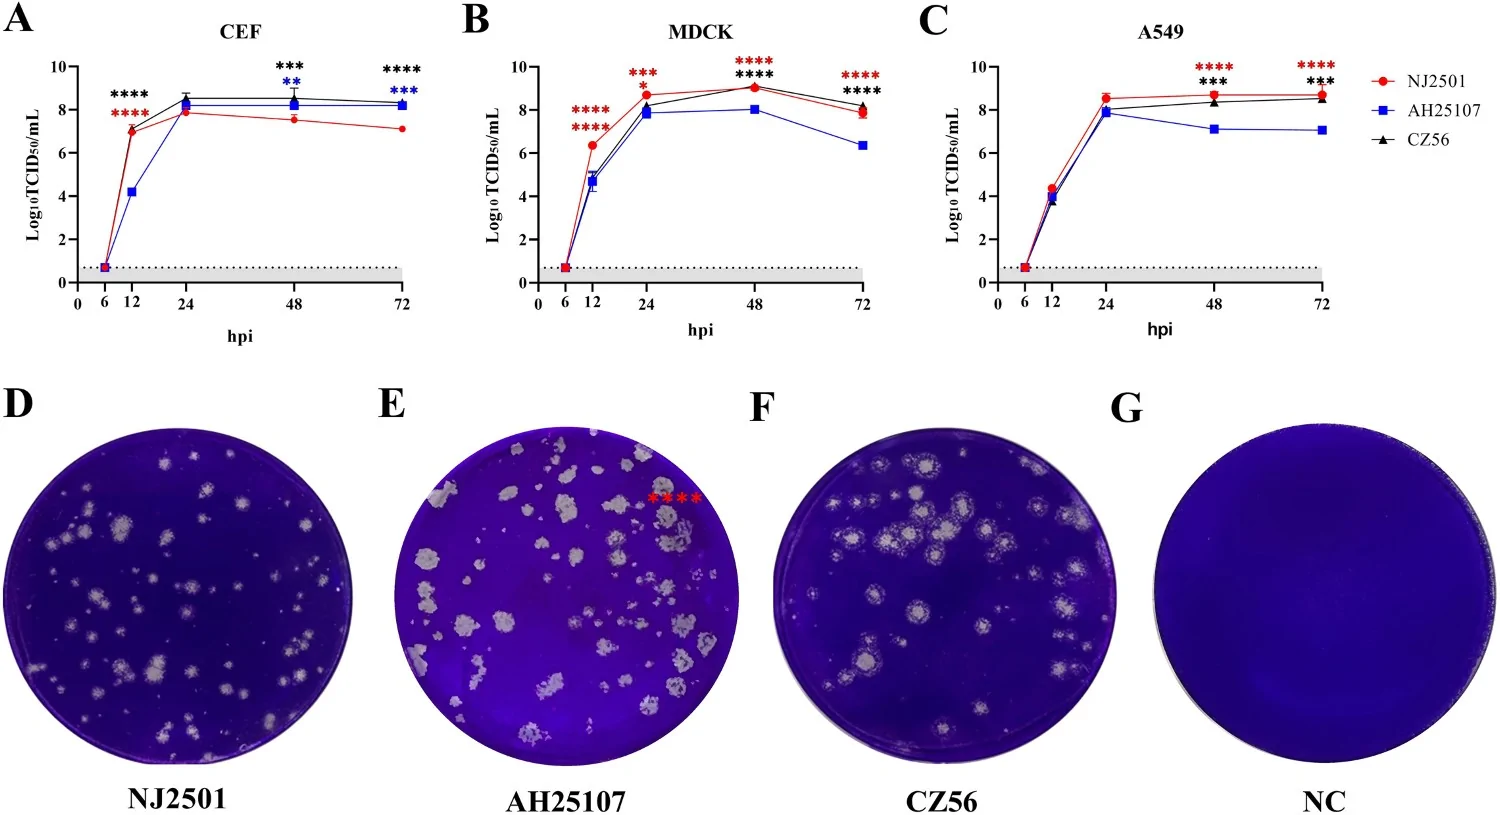
Figure 5. 图A-C为三种细胞(CEF、MDCK、A549)中的生长曲线,图D-G为MDCK细胞上的噬斑形态。读图时看病毒滴度随时间的变化:三个毒株均在24小时达到峰值(约10^8 TCID50/mL),且无需适应。核心信息是这些病毒具备跨物种复制的内在能力,为小鼠致病性实验提供体外依据。
结果6|H6分离株对小鼠高致病,NJ2501在感染后4天内造成100%死亡率
作者将5周龄BALB/c小鼠经鼻内感染10^5 TCID50的NJ2501、AH25107和CZ56,连续14天监测体重和存活率。结果显示,NJ2501感染组小鼠从感染后2天起出现明显临床症状,在4天内全部死亡(100%死亡率);AH25107和CZ56感染组各有75%的死亡率。病毒滴定显示,三个毒株在鼻甲和肺组织中均达到高滴度,但脑中未检出病毒;组织病理学检查(H&E染色)显示严重肺炎,伴有炎性细胞浸润和出血。这一结果在体外高效复制的基础上进一步证实,这些携带G57基因型H9N2内部基因的H6重组病毒无需适应即可在小鼠体内高效复制并导致严重疾病,凸显其哺乳动物致病潜力。
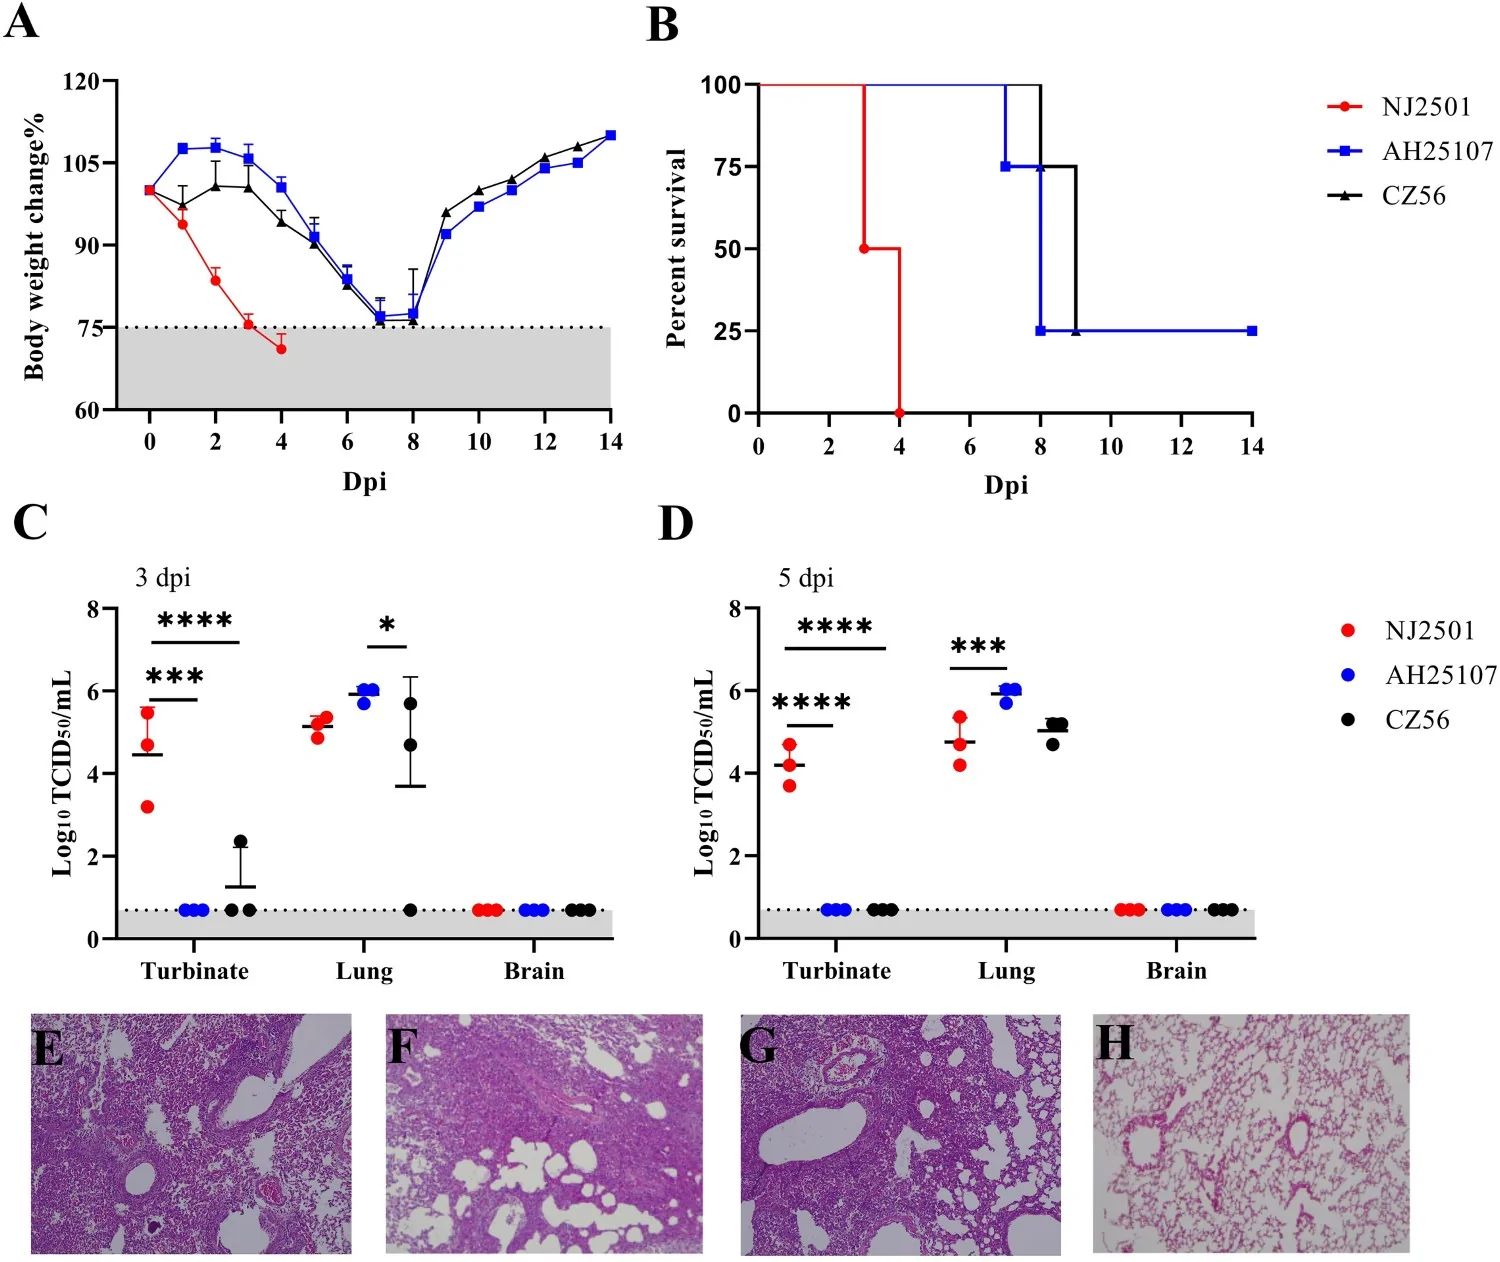
Figure 6. 图A-B为体重变化和存活曲线,图C-D为组织病毒滴度,图E-H为肺组织病理切片。读图时看存活曲线:NJ2501在4天内造成100%死亡,AH25107和CZ56为75%。病毒在鼻甲和肺中高滴度复制,脑中未检出。病理显示严重肺炎。核心信息是这些病毒无需适应即可在小鼠中高效复制并致死,凸显其哺乳动物致病潜力。
结果7|NJ2501的聚合酶活性显著高于CZ56,两者均高于野生水禽H6N2 E-Wigeon/158
为探究聚合酶活性是否与小鼠毒力差异相关,作者采用微型基因组双荧光素酶报告系统比较NJ2501和CZ56的核糖核蛋白(RNP)聚合酶活性,并以JX198(G57型H9N2、小鼠高致病)、XZ508(G57型H9N2、小鼠非致病)和野生水禽来源H6N2 E-Wigeon/158(小鼠非致病)作为对照。结果显示,NJ2501的相对荧光素酶活性约为25,显著高于CZ56(约6),两者均远高于E-Wigeon/158(接近0);JX198活性最高(约130),XZ508约为18。值得注意的是,NJ2501的聚合酶活性与XZ508相当,但后者对小鼠非致病,提示聚合酶活性虽为毒力重要决定因素,却并非唯一因素——HA/NA功能平衡、受体结合特性等共同塑造了整体毒力表型,这也解释了NJ2501与CZ56在小鼠死亡率上的差异。
板块4|鸡体内研究显示H6分离株引起呼吸道症状、可通过直接接触高效传播,且分离株间无显著抗原漂移
结果8|H6分离株在鸡中引起呼吸道症状,并通过直接接触在鸡群中高效传播
为评估H6分离株在家禽中的致病性与传播能力,作者选用NJ2501、AH25107和CZ56三个代表性毒株,以10⁶ TCID50剂量经鼻内感染10日龄SPF鸡,并各引入4只未感染鸡作为直接接触组。感染鸡自4 dpi起出现明显呼吸道症状(如羽毛蓬乱和张口呼吸),但无死亡;3 dpi时NJ2501和AH25107组气管中检出高滴度病毒(约10⁴~10⁵ TCID50/mL),而肺组织中未检出病毒,提示病毒主要在呼吸道局部复制。口咽拭子检测显示,所有感染鸡在2和4 dpi均排毒,且接触鸡在2 dpi(NJ2501组)即开始排毒,至4 dpi时各组接触鸡全部排毒;整个观察期内所有鸡的泄殖腔拭子均为阴性,表明病毒经呼吸道而非消化道排出。这一结果证实H6分离株能在鸡呼吸道高效复制并经直接接触快速传播,结合其在小鼠中的高致病性,提示这类重组病毒在鸡群中持续循环的同时具备向哺乳动物传播的潜在风险。
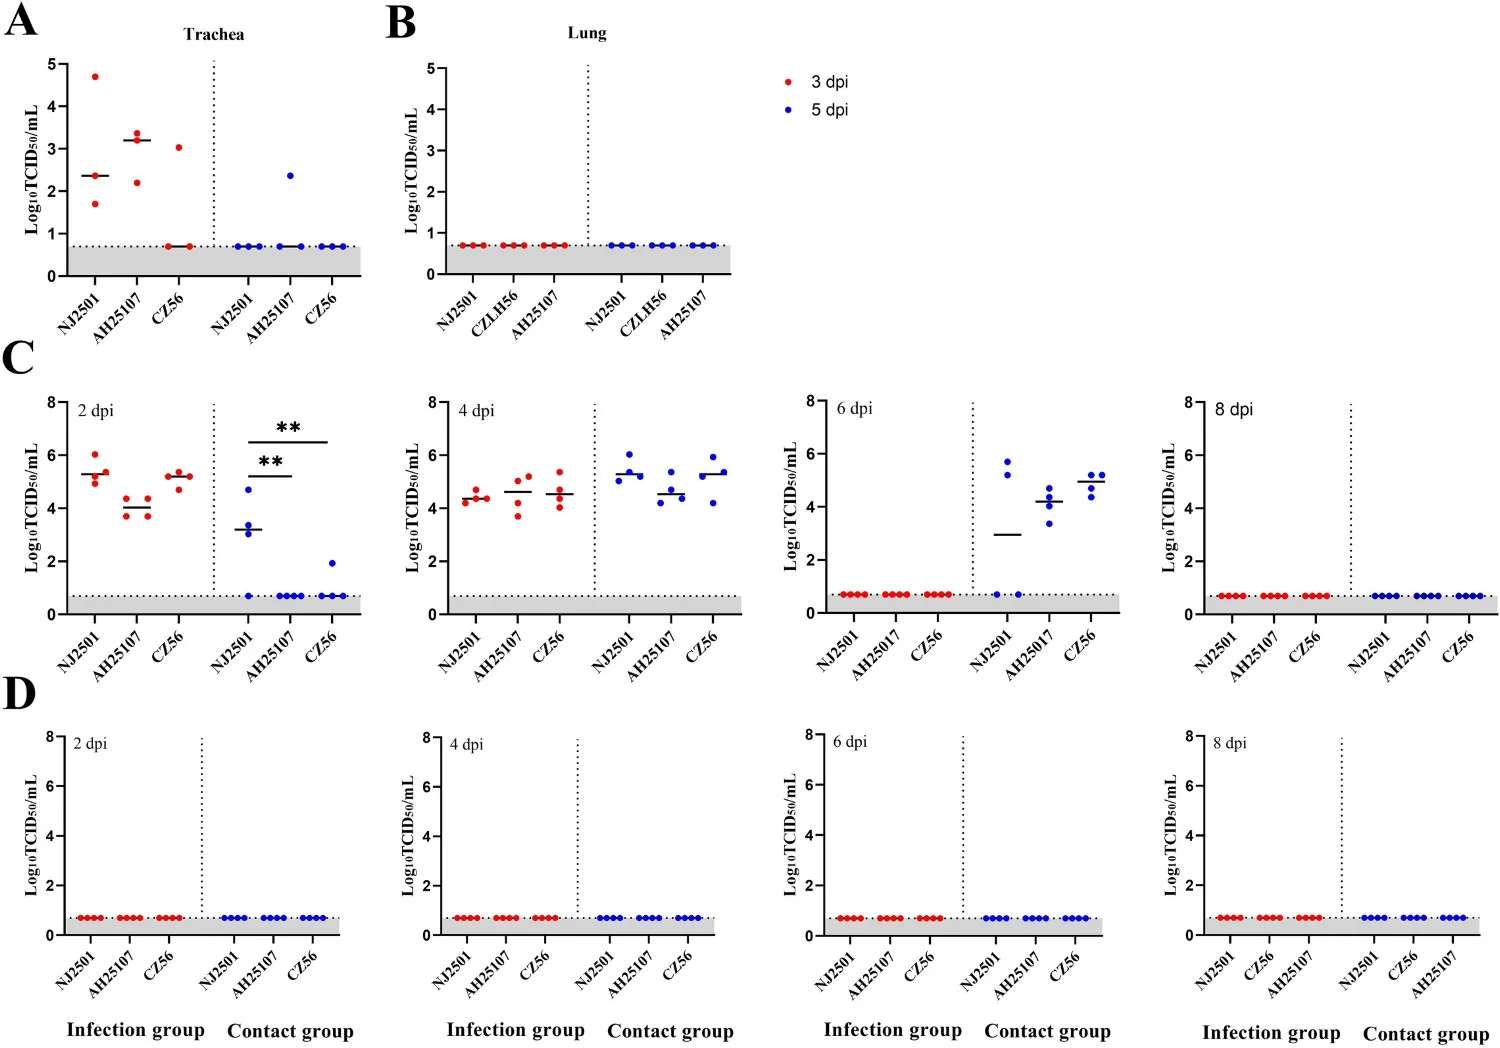
Figure 8. 图A-B为气管和肺组织病毒滴度,图C-D为口咽和泄殖腔拭子排毒动态。读图时看红点(感染鸡)和蓝点(接触鸡)的分布:感染鸡在3 dpi气管中检出高滴度病毒,肺中未检出;所有感染鸡在2和4 dpi经口咽排毒,接触鸡从2 dpi(NJ2501组)开始排毒,至4 dpi全部排毒。核心信息是病毒经呼吸道高效传播,结合小鼠高致病性,提示潜在公共卫生风险。
结果9|H6分离株之间无显著抗原漂移
为评估这些H6分离株间的抗原相关性,作者以NJ2501、AH25107和CZ56制备的抗血清进行交叉血凝抑制(HI)试验。结果显示,各病毒与其同源及异源抗血清的HI滴度均介于1:320至1:1280之间,交叉反应性良好,未出现某一抗血清对异源病毒滴度显著降低(≥4倍差异)的情况,表明这三个分离株在抗原上高度相关,未发生显著抗原漂移。这一发现与前述遗传分析一致——尽管这些病毒在表面基因(HA/NA)来源上存在差异(H6N1与H6N2),但其HA基因均属ST339-like谱系且序列高度保守,故抗原表位未发生实质改变。从公共卫生角度看,抗原稳定性意味着现有针对该谱系的疫苗或免疫策略可能仍具交叉保护效力;但同时也提示,这类病毒在鸡群中的持续传播并未受到免疫压力的有效选择,可能长期维持其传播适应性。
04 深度解读与讨论
【解读观点】本研究最值得关注的发现并非H6病毒本身,而是H9N2内部基因的“赋能”效应。G57基因型H9N2的内部基因组合(h9.3+h9.4混合)已被证实可增强聚合酶活性,本研究进一步证明,当这种内部基因骨架与H6表面基因组合时,确实赋予了病毒在小鼠中的高致病性——NJ2501在未适应情况下即导致100%死亡率,这在H6亚型中极为罕见 [Discussion]。
【解读观点】受体结合实验揭示了H6N2与H6N1的显著差异:NJ2501具备双受体结合能力(同时结合禽类和人类样受体),而H6N1分离株几乎不结合任何受体。作者通过重配病毒rCZ56(CZ56的HA+H9N2骨架)证明双受体结合是HA的内在属性,而非NA或内部基因的贡献 [Fig 4]。这一发现提示,H6N2亚型可能比H6N1具有更高的跨种传播潜力。
【解读观点】聚合酶活性与致病性的关系并非简单的线性对应。NJ2501聚合酶活性(~25)显著高于CZ56(~6),但同为G57基因型的XZ508(小鼠非致病)聚合酶活性(~18)与NJ2501相当 [Fig 7]。这说明聚合酶活性虽是致病性的重要决定因素,但HA受体结合特性、NA活性等功能协同可能同样关键——NJ2501恰好同时具备了高聚合酶活性和双受体结合能力 [Discussion]。
05 局限与展望
本研究存在若干方法学局限。首先,缺乏真实的非重配亲本H6病毒作为直接实验对照,无法精确量化重配事件对表型的净贡献 [Discussion]。其次,固相糖链结合实验可能无法完全反映体内复杂的受体使用情况——体外不结合受体的H6N1病毒在体内仍能高效复制并导致小鼠死亡,提示可能存在其他入侵途径或共受体机制 [Discussion]。第三,导致NJ2501与CZ56小鼠致病性差异的分子机制尚未完全阐明,聚合酶活性之外的关键氨基酸位点有待进一步反向遗传学验证 [Table 1]。
展望方面,作者强调持续监测的重要性:H6病毒在鸡群中的无症状或轻症循环,加上H9N2内部基因的频繁重配,可能产生具有大流行潜力的新型病毒。未来研究应关注活禽市场这一关键生态位,并建立针对H6亚型的系统性监测网络 [Discussion]。
06 科研思路启发
本研究为“生信+基础实验”的经典范式提供了可借鉴的模板,尤其在禽流感病毒监测领域。以下是从中提炼的科研套路:
选题策略:抓住“已知风险基因供体(H9N2内部基因)× 新兴表面基因(H6)”的交叉点。不追求全新发现,而是聚焦“已有风险因素的新组合”,这既降低了选题难度,又保证了科学意义。
证据链设计:从“遗传特征(生信)→ 分子功能(受体/聚合酶)→ 体外表型(生长曲线)→ 体内致病性(小鼠/鸡)→ 传播动力学(接触传播)”五级递进,每一级都为下一级提供生物学合理性支撑。
对照设置的艺术:聚合酶活性实验中,作者精心选择了三个对照——JX198(高致病H9N2)、XZ508(非致病H9N2)、E-Wigeon/158(野生水禽H6N2),通过对比排除“内部基因单独决定致病性”的简单结论,揭示多因素协同。
图表呈现:重配来源示意图(Fig 2)用色块清晰展示8个基因节段的来源,比冗长的文字描述更直观,是“一张图讲清复杂重配事件”的范例。
写作技巧:在Discussion中不回避矛盾数据(如XZ508的聚合酶活性与致病性不匹配),而是将其转化为对机制复杂性的讨论,反而增强了论证的深度。
金句
当H9N2的“基因引擎”装上H6的“表面天线”,新型重配病毒在小鼠实验中展现出100%致死率——这不是简单的基因拼接,而是一场跨物种传播风险的重新洗牌。