
DNMT3A催化活性活细胞追踪:结构引导工程改造揭示着丝粒甲基化新机制
本文是对2026年发表于《Nucleic Acids Res》的一项临床前研究的解读,属科研资讯分享,不构成任何诊疗建议。这篇工作最抓人的地方,是把DNMT3A这个关键甲基化酶'驯化'成了能自己报位置的探针——通过一个精妙的点突变,让它在活细胞里只标记自己催化的位点,然后直接画出全基因组活性图谱。结果还意外发现它在着丝粒卫星序列上特别活跃,这跟之前以为的CpG岛偏好很不一样,值得细读。
期刊:Nucleic Acids Research(IF: 15.0,Q1)
发表时间:2026年9月22日
原文标题:Live-cell DNMT3A "catalysome" mapping using engineered methyl-transfer pathways.
翻译标题:DNMT3A催化活性活细胞追踪:结构引导工程改造揭示着丝粒甲基化新机制
研究设计:基础科学研究:体外酶学 + CRISPR prime editing细胞系 + 基因组测序(Dnmt-TOP-seq)
样本/模型:小鼠胚胎干细胞(mESC)E14TG2a及工程改造细胞系(Dnmt3aR887A/R887G、Mat2aI117A)
主要结局:DNMT3A催化活性基因组分布图谱:CpG岛、启动子、增强子及主要卫星序列富集
关键发现:R887G突变体对合成辅因子Ado-6-azide选择性比R887A高约7.5倍;活细胞中R887G标记效率比R887A高2-4倍
全文技术路线图
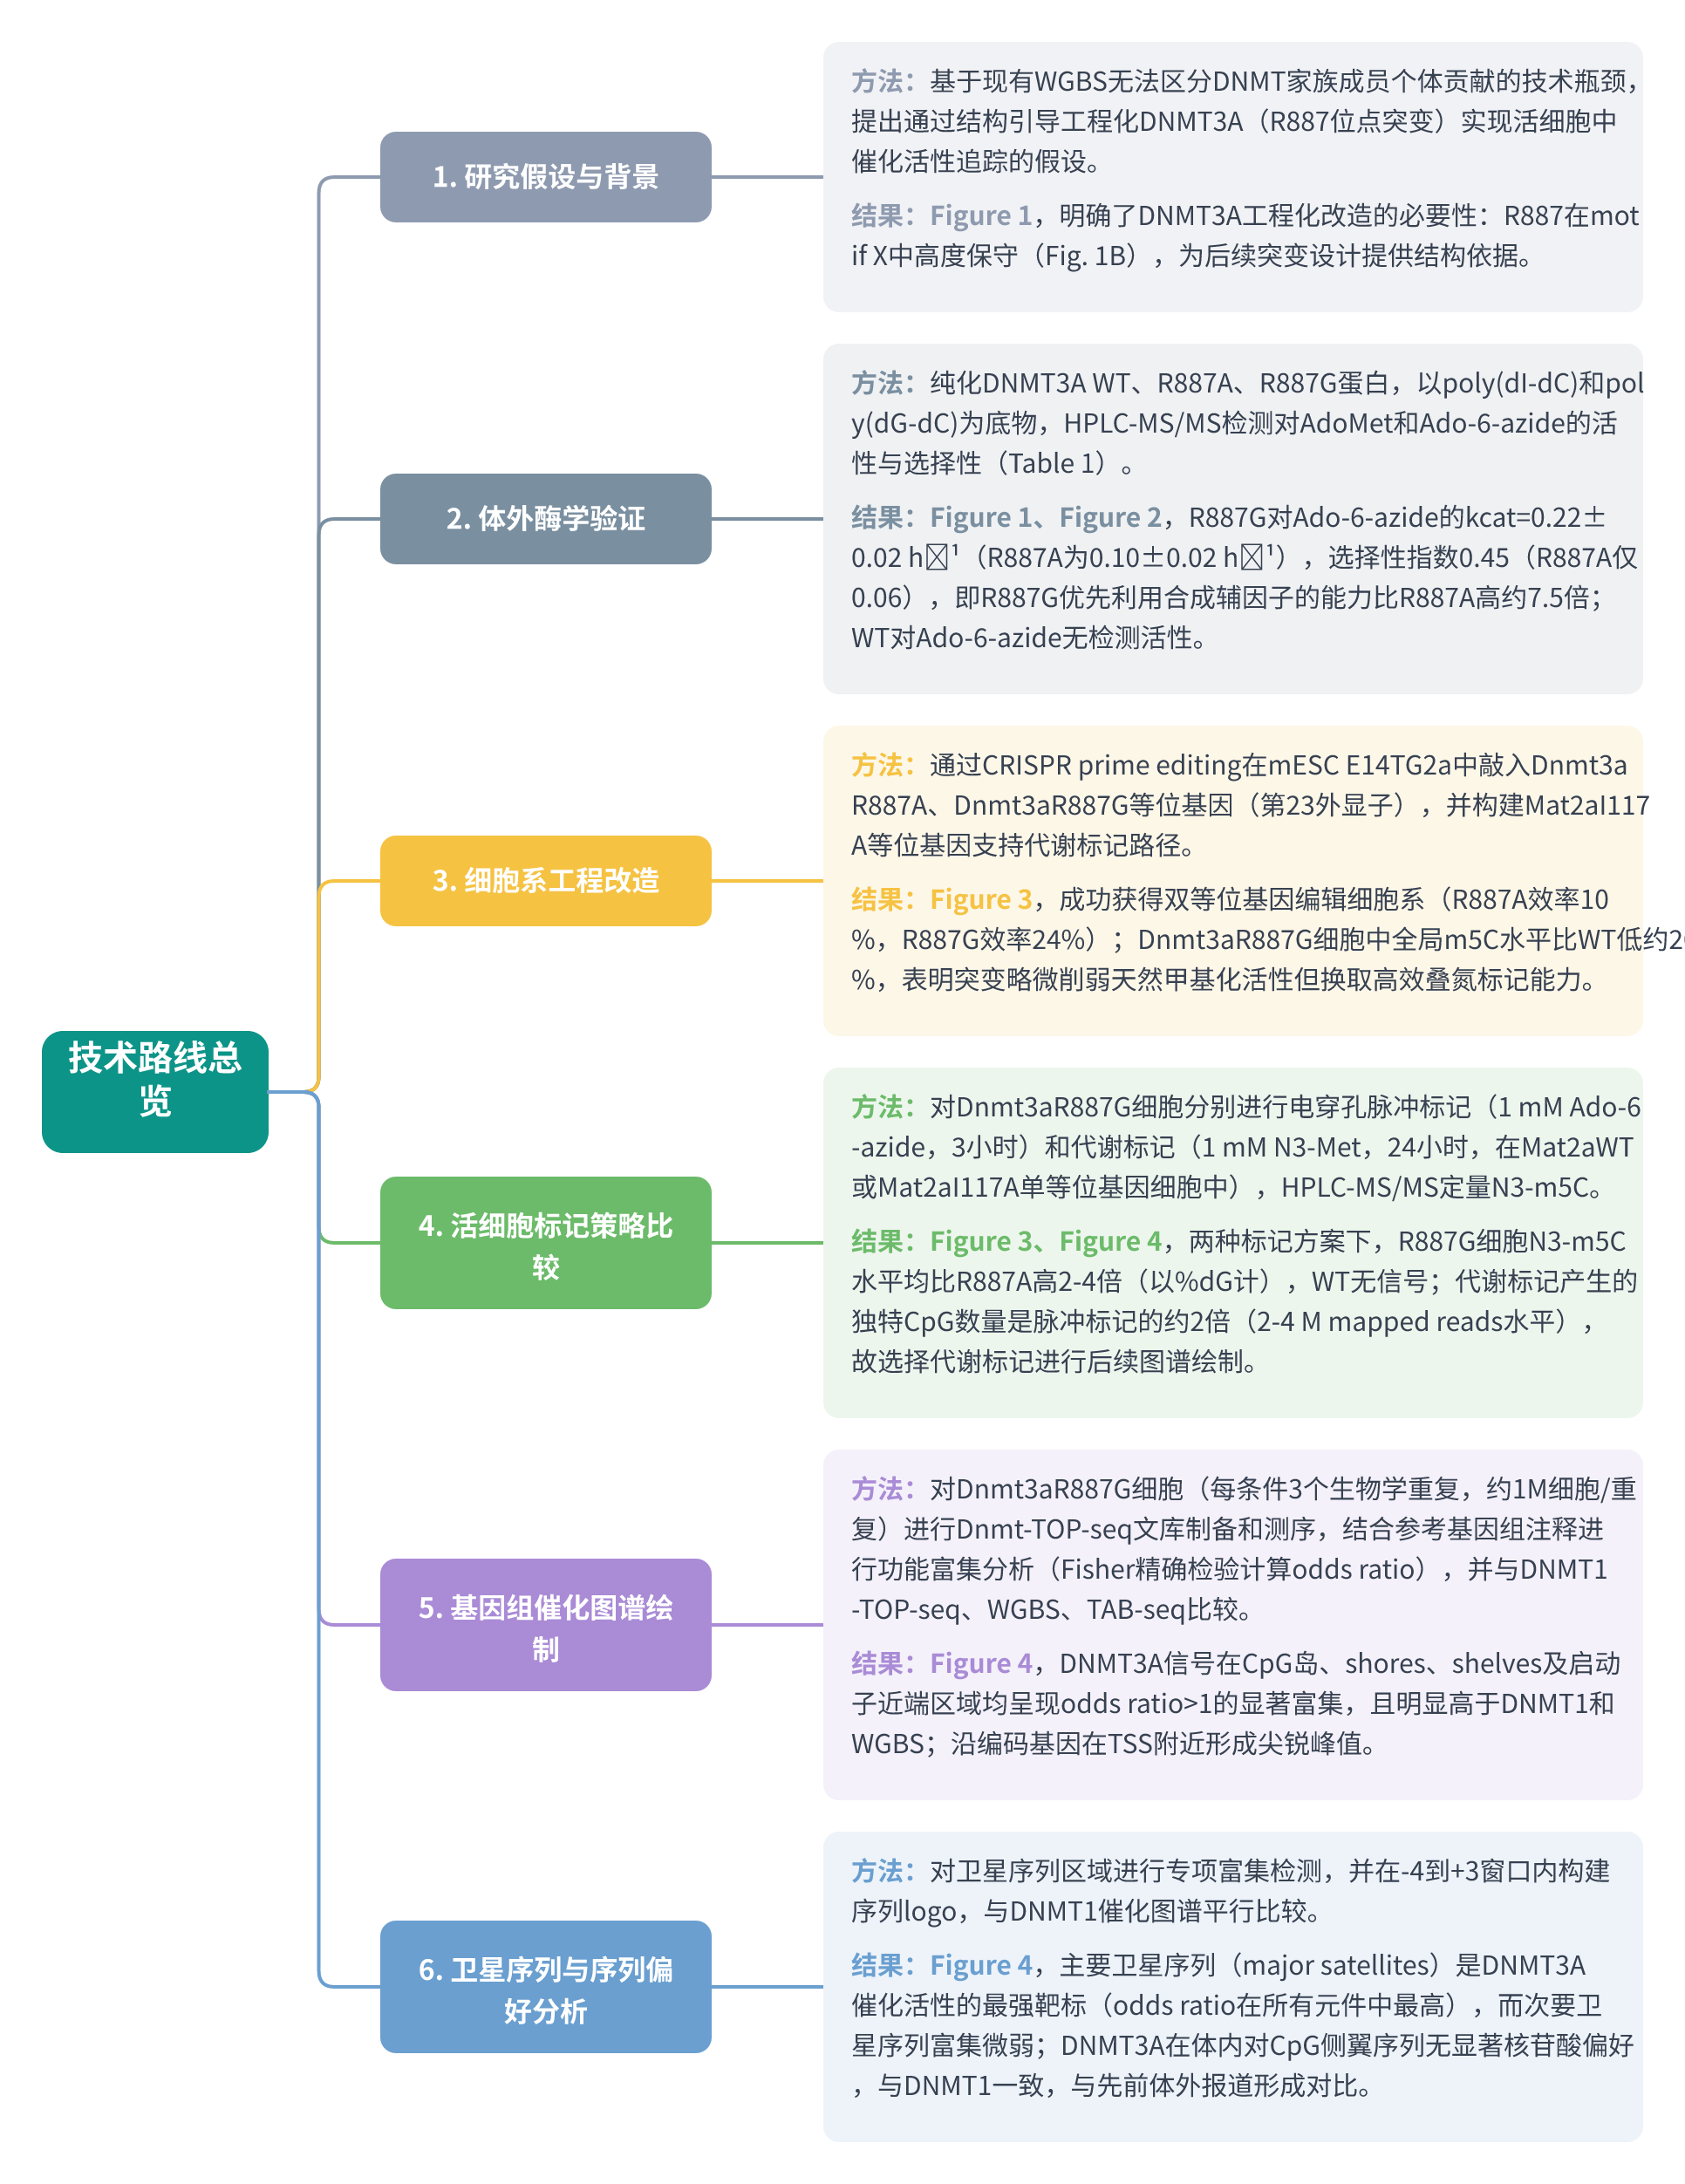
01 研究背景与科学问题:DNA甲基化写入器的个体贡献如何解析?
DNA甲基化(5-甲基胞嘧啶,m5C)是哺乳动物细胞身份建立与维持的关键表观遗传修饰,由DNMT3A/3B(从头甲基化)和DNMT1(维持甲基化)协同完成 [Introduction]。然而,长期以来技术瓶颈在于:现有方法(如WGBS)只能读取甲基化的最终状态,无法区分哪个DNMT酶在何时、何地执行了催化。这就像只看照片却不知道是谁按的快门。
此前该团队已通过“bump-and-hole”策略工程化DNMT1(N1580A突变),使其能利用合成辅因子Ado-6-azide进行DNA叠氮标记,开发了Dnmt-TOP-seq技术 [Introduction]。但DNMT3A的工程化改造一直未成功,因其催化口袋更紧凑、对辅因子类似物的容忍度更低。本研究旨在:通过结构引导的DNMT3A工程改造,实现在活细胞中直接追踪DNMT3A催化活性的时空分布,从而揭示其在基因组上的个体贡献。
02 数据来源与方法:从体外酶学到活细胞基因组标记
研究采用层层递进的实验设计 [Methods]:
体外酶学验证:对DNMT3A进行结构引导的R887A/R887G突变,纯化蛋白后以poly(dI-dC)和poly(dG-dC)为DNA底物,用HPLC-MS/MS检测其对AdoMet和Ado-6-azide的活性与选择性(Table 1)。
细胞系工程改造:通过CRISPR prime editing在小鼠胚胎干细胞(mESC)E14TG2a中敲入Dnmt3aR887A、Dnmt3aR887G等位基因,并构建Mat2aI117A等位基因以支持代谢标记路径 [Methods]。
活细胞标记:采用两种策略——电穿孔脉冲导入Ado-6-azide(3小时)和代谢标记N3-Met(24小时,正常或甲硫氨酸限制条件)。
基因组分析:提取gDNA后进行Dnmt-TOP-seq文库制备和测序,结合参考基因组注释进行功能富集分析(Fisher精确检验计算odds ratio),并与DNMT1-TOP-seq、WGBS、TAB-seq数据比较 [Methods]。统计采用R 4.3.0,P<0.05为显著。
03 研究结果:从酶工程改造到DNMT3A催化图谱的绘制
本研究通过结构引导的DNMT3A工程改造,成功实现了在小鼠胚胎干细胞中对DNMT3A催化活性的直接、选择性追踪,并绘制了其基因组范围的催化图谱,揭示了CpG岛、启动子近端及主要卫星序列上的显著富集。
板块1|DNMT3A工程改造的体外验证:R887G突变体对合成辅因子Ado-6-azide具有最高且优先的叠氮烷基化活性
结果1|R887G突变体在体外对Ado-6-azide具有最高的叠氮烷基化活性,且对合成辅因子的选择性比R887A高约7.5倍
作者基于DNMT3A催化口袋的结构引导设计,在motif X中引入R887A和R887G两种位点特异性突变,以扩大辅因子结合腔从而容纳延伸型合成辅因子Ado-6-azide。在体外酶学实验中,作者以poly(dI-dC)·poly(dI-dC)为DNA底物,在100 μM辅因子、50 nM酶、37°C条件下反应2小时,通过HPLC-MS/MS定量检测产物。结果显示,野生型DNMT3A对Ado-6-azide几乎无活性(未检测到产物),而R887G突变体表现出最高的表观转换率(kcat=0.22±0.02 h⁻¹),约为R887A(kcat=0.10±0.02 h⁻¹)的2.2倍;两者的KM值相近(均为0.44 μM)。更重要的是,在AdoMet与Ado-6-azide等摩尔混合条件下,R887G对合成辅因子的选择性指数达0.45,而R887A仅为0.06,即R887G优先利用合成辅因子的能力比R887A高约7.5倍。这一结果说明,R887G的单氨基酸置换(精氨酸→甘氨酸)通过消除侧链的空间位阻,在不显著牺牲天然底物亲和力的前提下,为延伸型辅因子提供了更优的容纳空间,是体外验证中最有效的工程突变体,为后续活细胞应用奠定了酶学基础。
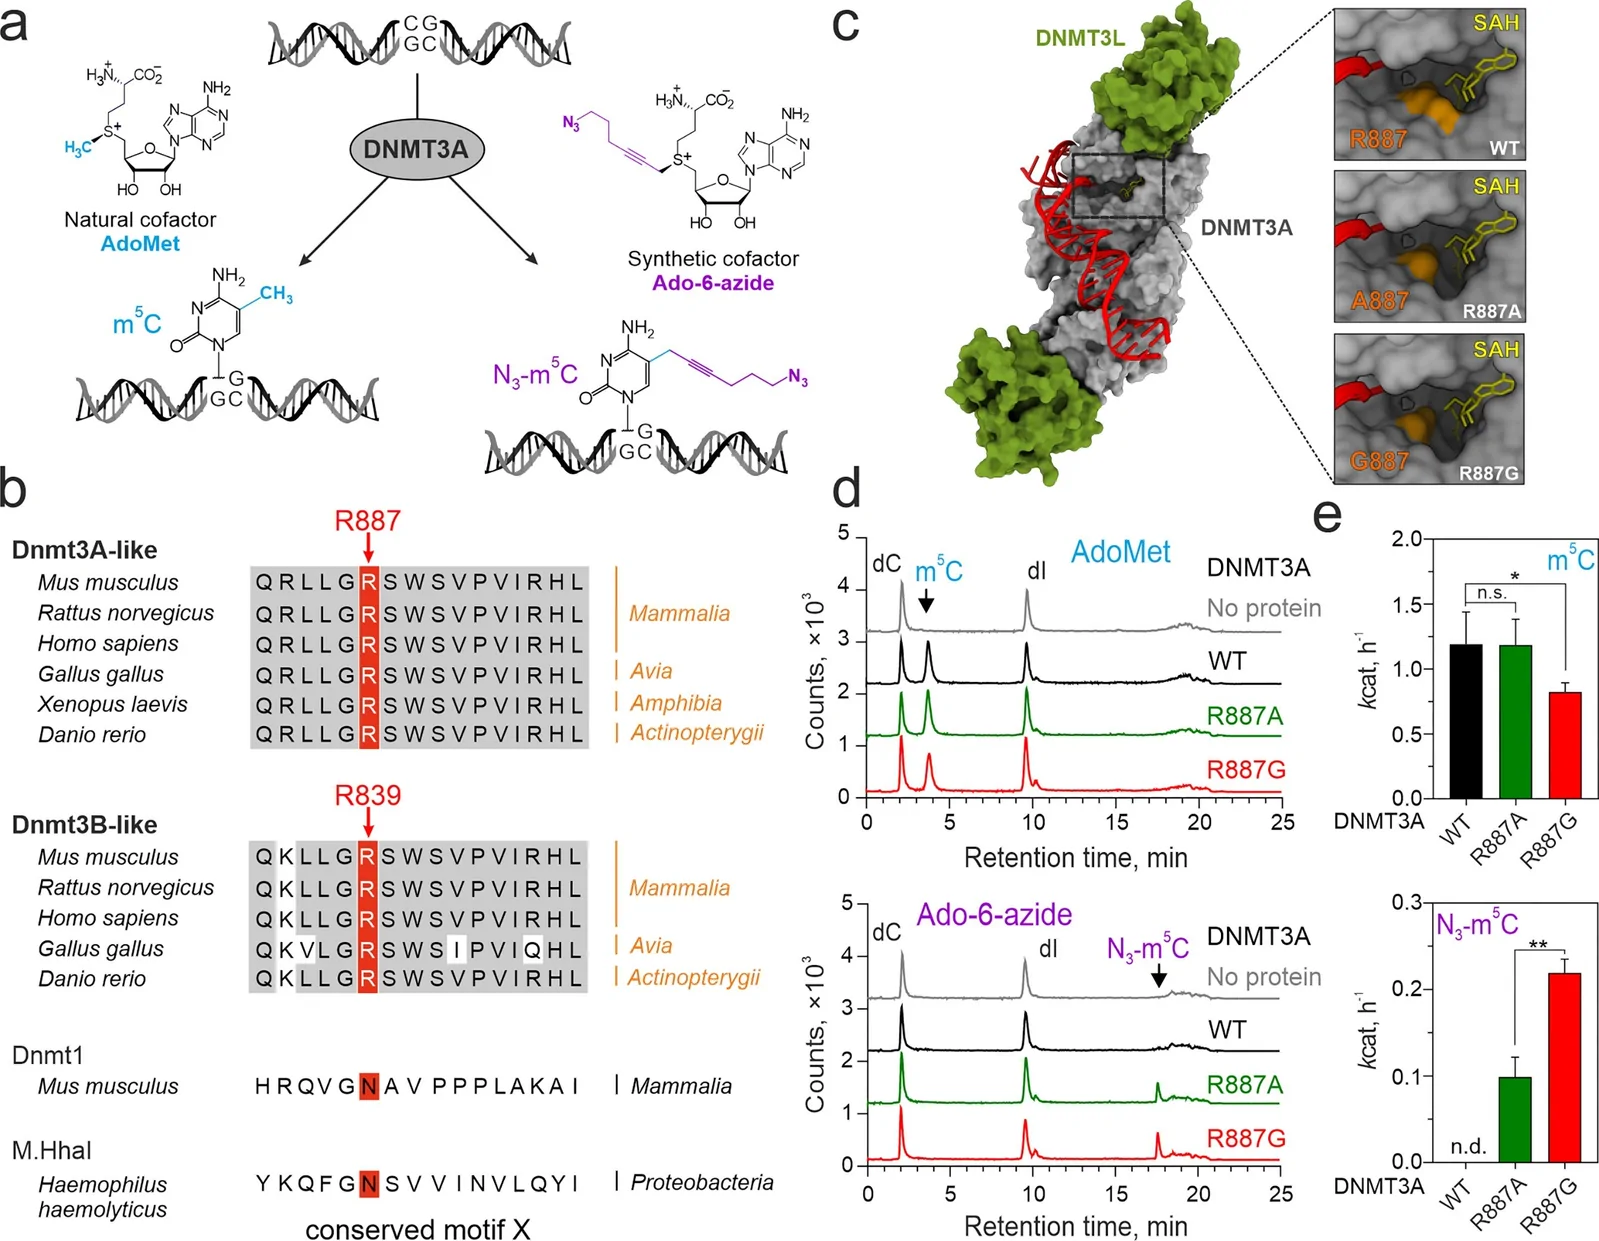
Figure 1. 多面板图包含催化机制示意图(A)、R887残基保守性分析(B)、催化口袋结构模型(C)、HPLC-MS/MS色谱图(D)和表观转换率柱状图(E)。读图时重点关注E图:R887G对Ado-6-azide的转换率(0.22 h⁻¹)显著高于R887A(0.10 h⁻¹),而WT几乎无活性(n.d.)。核心信息是R887G是体外最有效的工程突变体,为后续活细胞应用奠定酶学基础。
结果2|在辅因子等摩尔混合及MAT2A-DNMT3A级联反应条件下,R887G优先利用合成辅因子,支持活细胞应用
在确认R887G对Ado-6-azide具有最高活性后,作者进一步检验其在更接近生理条件下的辅因子选择性。在稳态条件下,作者将6 μM poly(dI-dC)·poly(dI-dC)底物与800 nM DNMT3A变体、100 μM总辅因子(AdoMet与Ado-6-azide等摩尔混合)于37°C反应4小时,HPLC-MS/MS分析显示R887G产生的N3-m5C(叠氮标记产物)显著高于R887A,表明即使在天然辅因子存在时,R887G仍优先利用合成辅因子进行DNA叠氮烷基化。此外,作者构建了MAT2A-DNMT3A级联反应体系,利用工程化甲硫氨酸腺苷转移酶(MAT2A I117A)将叠氮甲硫氨酸(N3-Met)转化为Ado-6-azide,再供DNMT3A变体使用;色谱图证实两种变体均能在该级联反应中利用N3-Met产生N3-m5C。这一结果在酶学层面证明了两点:其一,R887G对合成辅因子的偏好性在竞争条件下依然保持,这是活细胞中内源性AdoMet大量存在时仍能实现选择性标记的关键前提;其二,级联反应的成功验证了代谢标记途径(N3-Met→Ado-6-azide→DNA标记)的可行性,为后续在活细胞中通过代谢前体供给合成辅因子提供了直接依据。
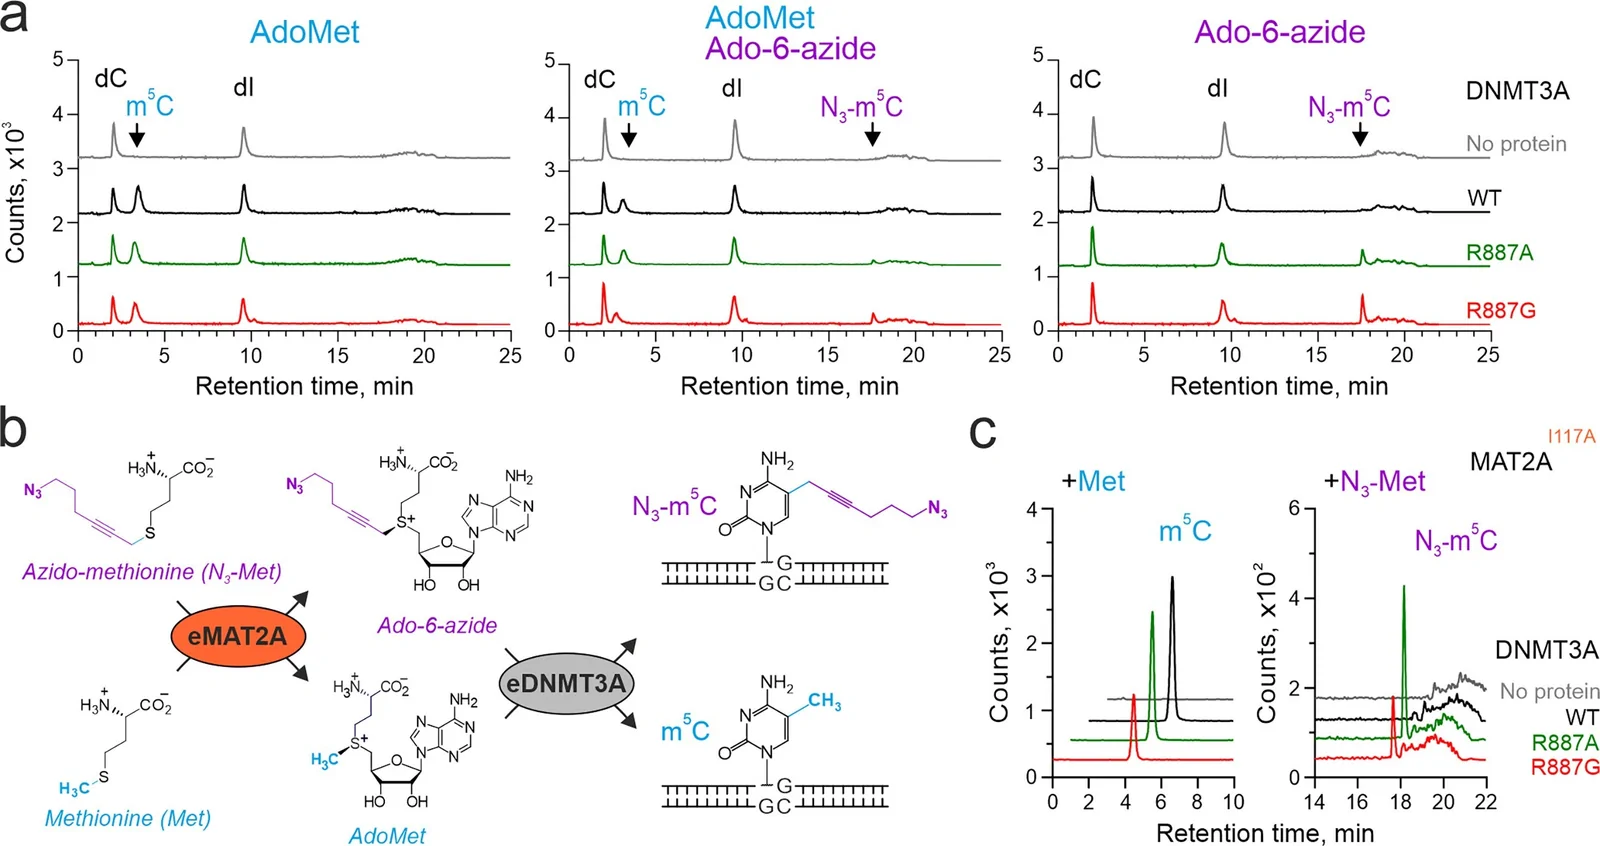
Figure 2. 多面板图包含辅因子选择性比较(A)、MAT2A-DNMT3A级联反应示意图(B)和级联反应色谱图(C)。读图时关注A图:在AdoMet与Ado-6-azide等摩尔混合时,R887G产生的N3-m5C显著高于R887A,证明其选择性优势。核心信息是R887G在存在天然辅因子时仍能优先利用合成辅因子,且级联反应验证了代谢标记途径的可行性,为活细胞应用提供直接依据。
板块2|活细胞中DNMT3A特异性基因组标记的建立:R887G细胞系实现高效叠氮标记,且代谢标记优于脉冲标记
结果3|在小鼠胚胎干细胞中,Dnmt3aR887G mESCs比R887A细胞系表现出2-4倍更高的基因组叠氮标记效率
为将工程化DNMT3A应用于活细胞,作者通过CRISPR prime editing在Dnmt3a基因第23外显子中敲入R887A或R887G突变,构建了稳定细胞系。随后采用两种策略进行基因组标记:电穿孔脉冲导入1 mM Ado-6-azide(3小时)或代谢标记1 mM N3-Met(24小时)。HPLC-MS/MS定量显示,在两种标记方案下,Dnmt3aR887G细胞中的N3-m5C水平均比R887A细胞高2-4倍(以%dG计),而Dnmt3aWT细胞中未检测到N3-m5C信号。作者还发现,R887G细胞中全局m5C水平比WT低约20%,表明该突变虽略微削弱天然甲基化活性,但换取了高效的叠氮标记能力。这一结果与体外酶学数据一致(R887G对Ado-6-azide的选择性为0.45,R887A仅为0.06),证实R887G是活细胞中追踪DNMT3A催化活性的最优工程变体,为后续基因组图谱绘制奠定了细胞模型基础。
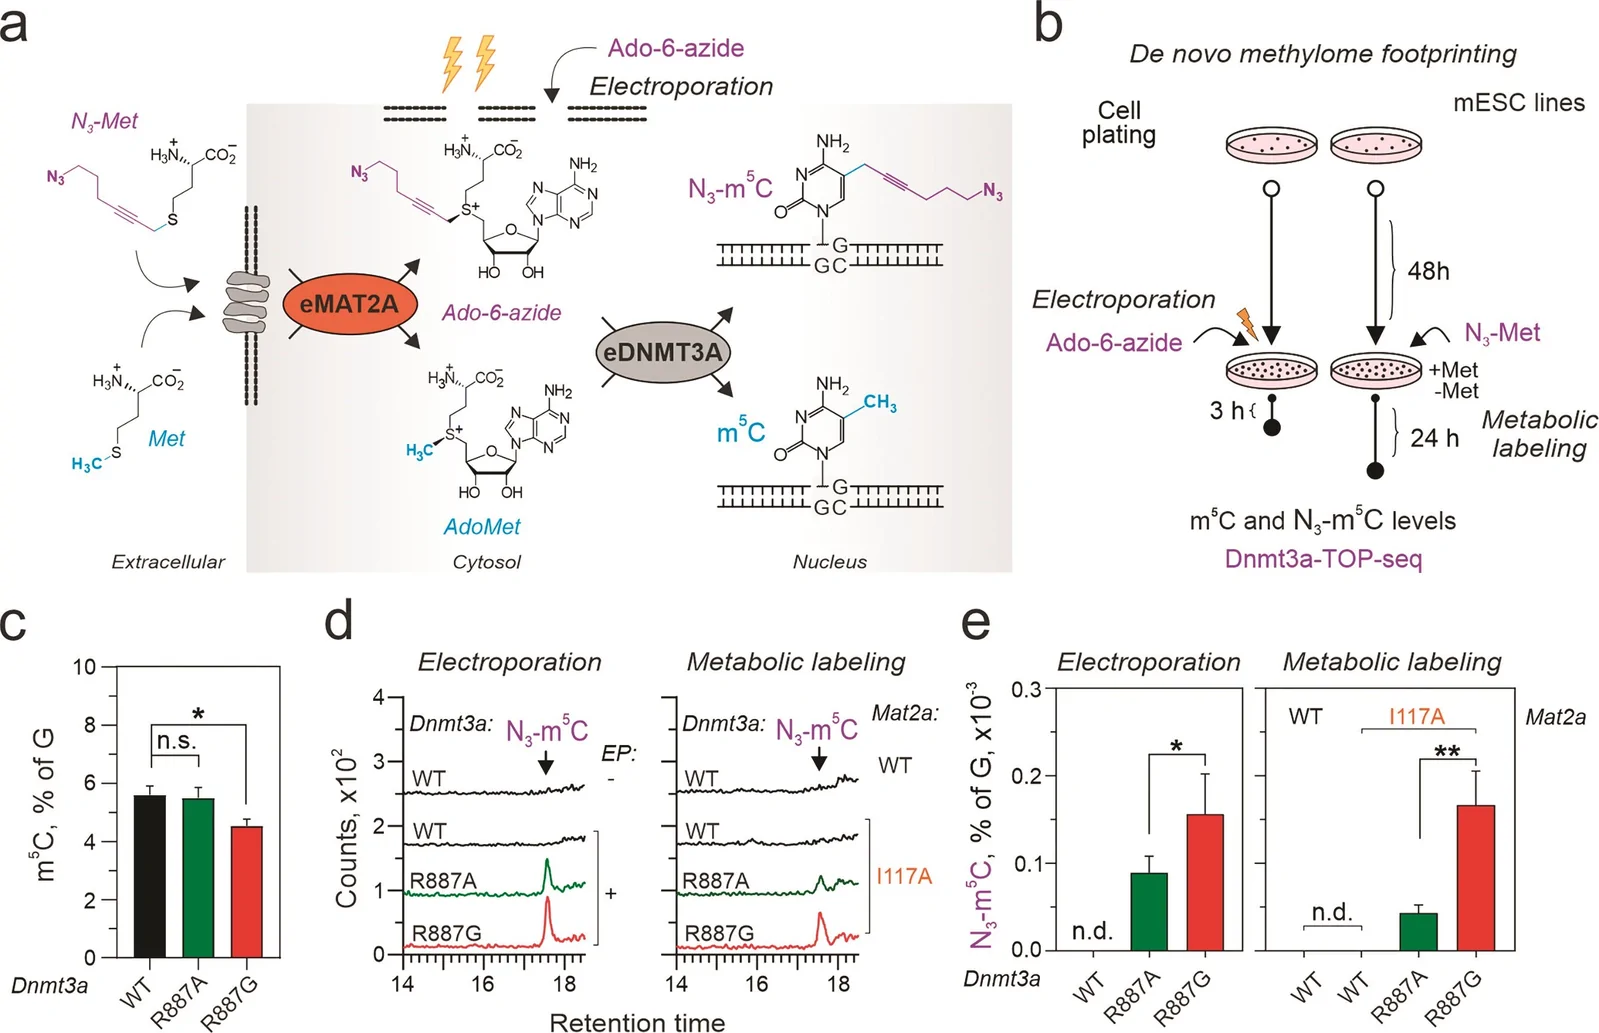
Figure 3. 多面板图包含两种标记策略示意图(A)、实验流程(B)、全局m5C水平(C)、N3-m5C检测(D)和标记效率定量(E)。读图时关注C和E:R887G细胞m5C水平比WT低约20%,但N3-m5C水平比R887A高2-4倍,WT无信号。核心信息是R887G是活细胞中追踪DNMT3A催化活性的最优工程变体,为基因组图谱绘制奠定细胞模型基础。
结果4|代谢标记(N3-Met)比电穿孔脉冲标记(Ado-6-azide)产生约2倍多的修饰CpG数量
在确定R887G为最佳工程变体后,作者进一步比较了两种活细胞标记方案的基因组覆盖效率。对Dnmt3aR887G细胞分别进行电穿孔脉冲标记(1 mM Ado-6-azide,3小时)和代谢标记(1 mM N3-Met,24小时,在Mat2aWT或携带单个Mat2aI117A等位基因的细胞中),随后构建Dnmt-TOP-seq文库。测序结果显示,代谢标记方案产生的独特CpG数量是脉冲标记的约2倍(在2-4 M mapped reads水平下)。这一差异可能源于两种机制:代谢标记通过细胞膜通透性的N3-Met持续供给辅因子,允许DNMT3A在24小时内多次催化循环;而电穿孔脉冲仅提供一次性的辅因子脉冲,标记窗口较短。此外,在Mat2aI117A单等位基因细胞中进行的代谢标记进一步增强了标记效率,说明工程化MAT2A与DNMT3A的级联配合能更有效地将叠氮基团引入基因组。基于代谢标记更高的基因组覆盖度,作者选择该方案进行后续的DNMT3A催化图谱绘制。
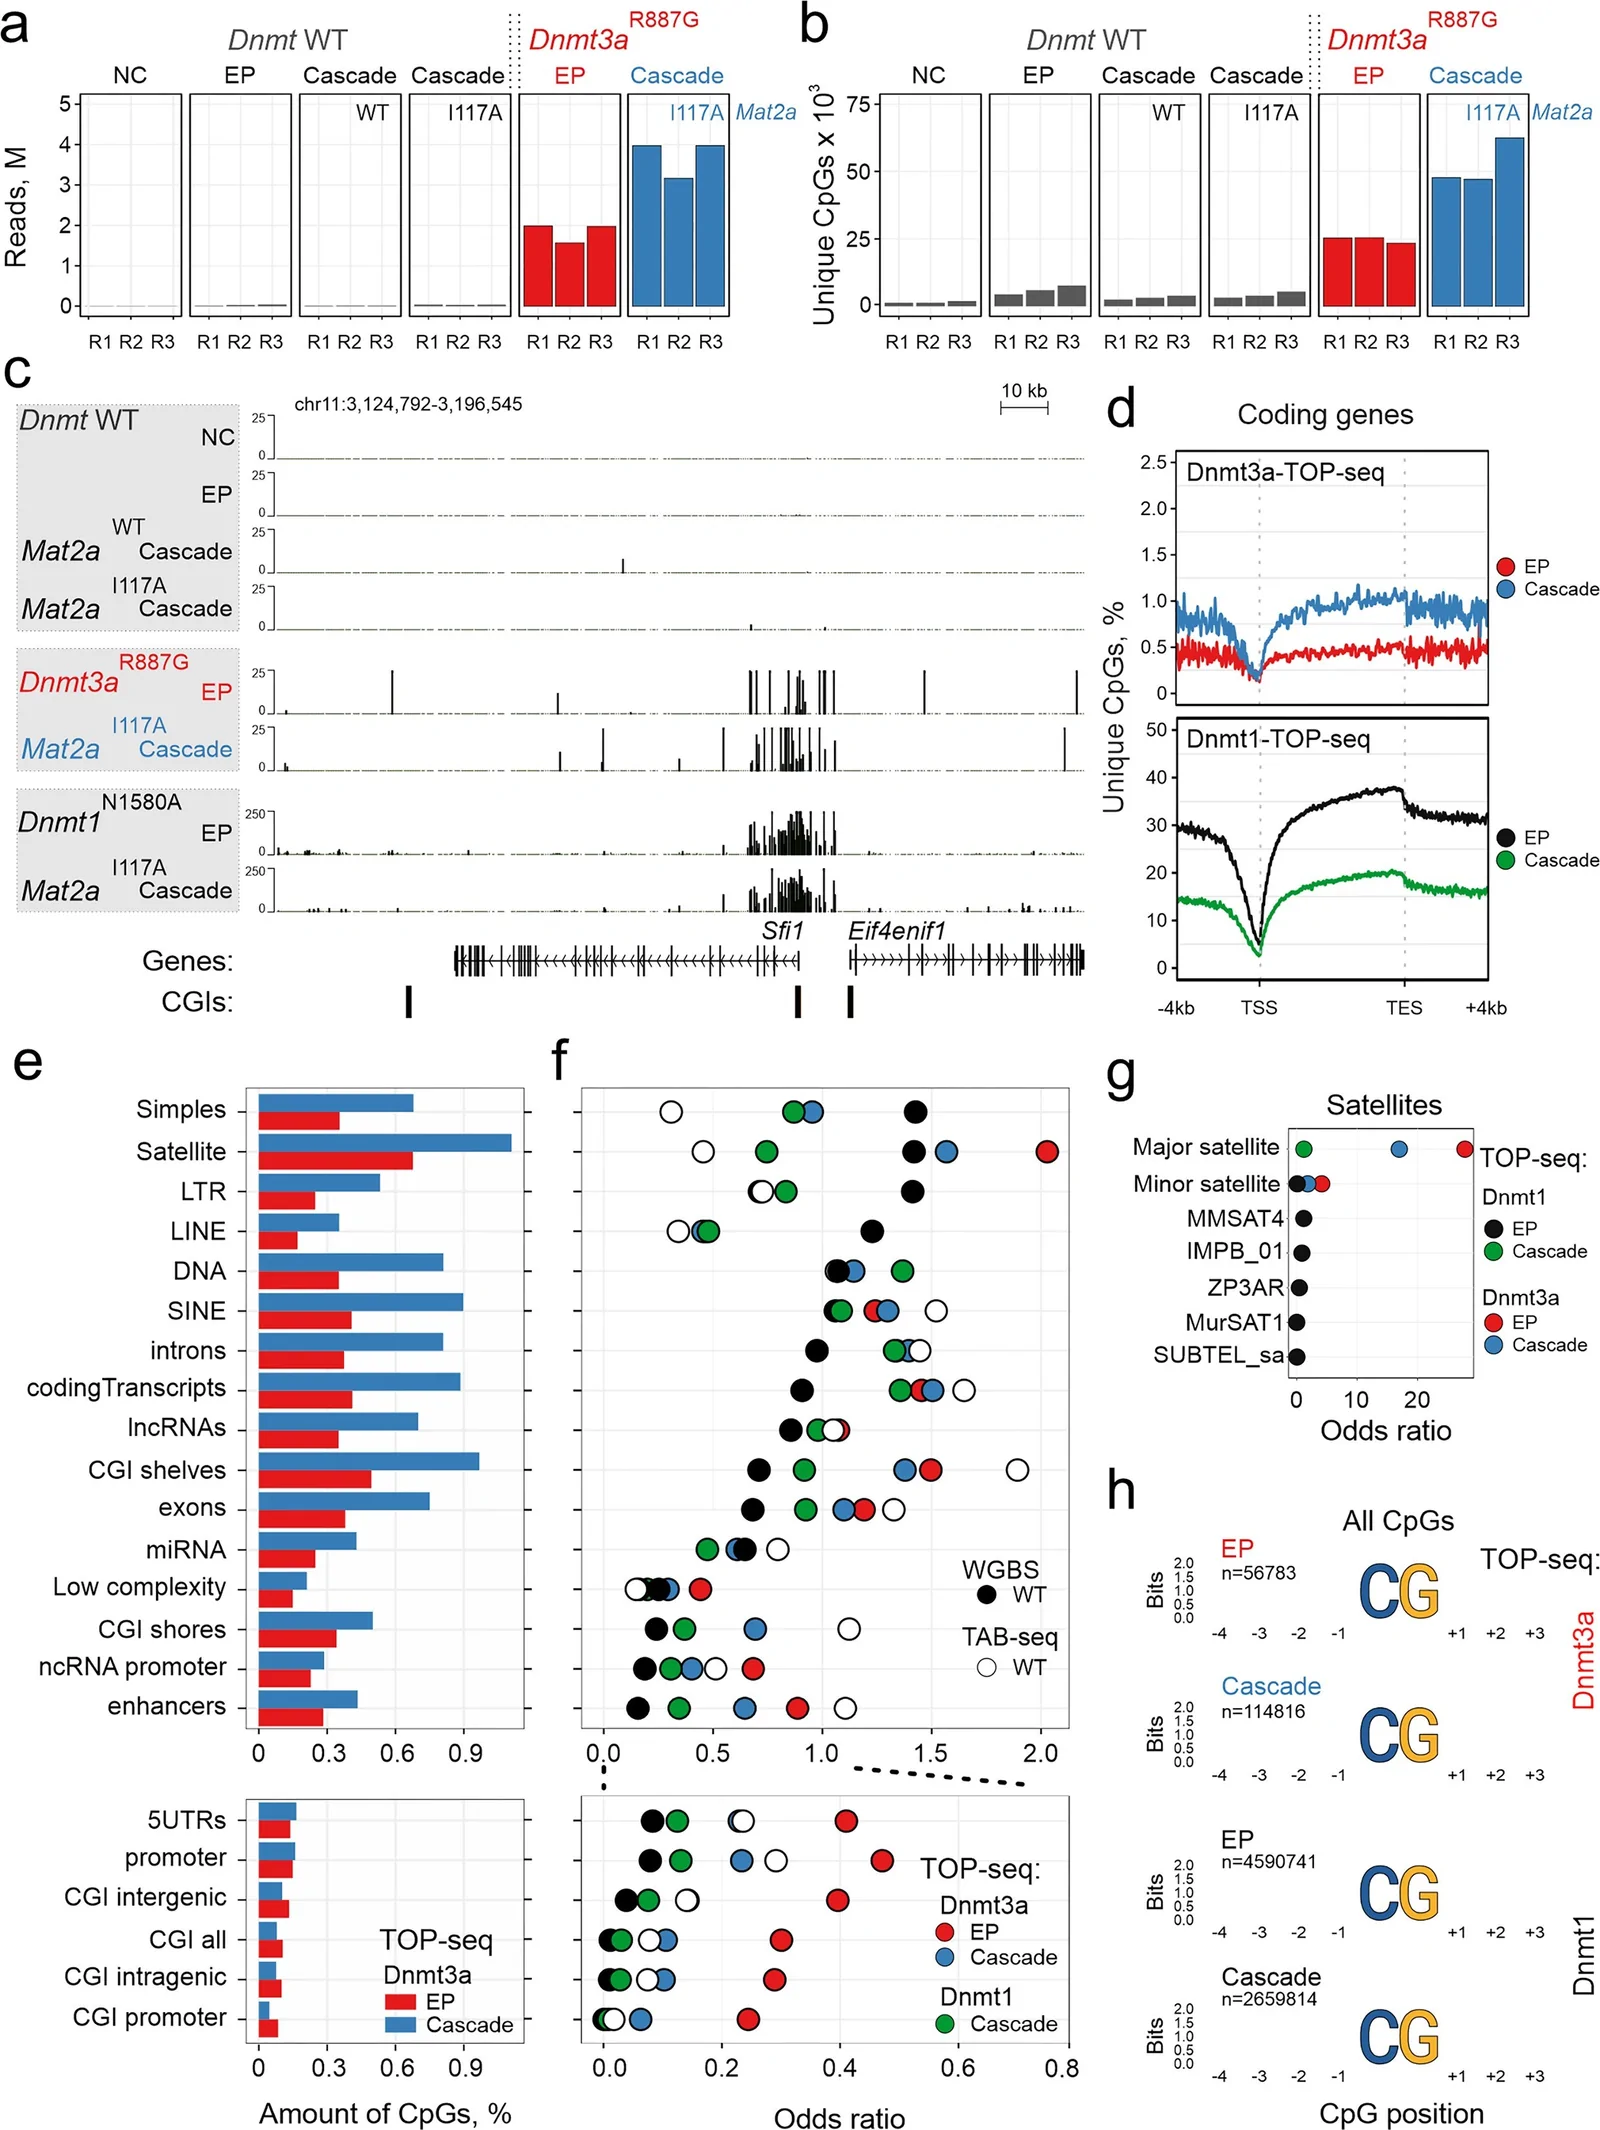
Figure 4. 多面板图包含mapped reads计数(A)、独特CpG数量(B)、基因组浏览器示例(C)、沿基因分布(D)、基因组元件分布(E)、富集分析(F)、卫星序列富集(G)和侧翼序列logo(H)。读图时重点关注F和G:DNMT3A在CGI、启动子等区域富集(odds ratio>1)且高于DNMT1和WGBS;major satellites富集最强。H图显示无侧翼序列偏好。核心信息是DNMT3A催化活性优先靶向调控序列和着丝粒卫星序列,与TET形成动态对立。
板块3|基因组范围DNMT3A催化图谱的绘制:DNMT3A在CpG岛、启动子近端和增强子区域显著富集,并在主要卫星序列上最强富集,但无侧翼序列偏好
结果5|DNMT3A催化活性在CpG岛、shores、shelves和启动子近端区域显著富集,且高于DNMT1和WGBS信号
作者利用Dnmt3aR887G细胞系(每条件3个生物学重复,约1M细胞/重复)进行TOP-seq文库构建,通过电穿孔脉冲导入Ado-6-azide(3小时)或N3-Met代谢标记(24小时)后,对基因组范围内DNMT3A催化活性位点进行定位。富集分析显示,DNMT3A信号在CpG岛(CGI)、shores、shelves及启动子近端区域均呈现odds ratio>1的显著富集,且这一富集程度明显高于DNMT1(Dnmt1N1580A)和WGBS(Dnmt WT)数据集中的对应信号。沿编码基因的分布分析进一步显示,DNMT3A修饰在转录起始位点(TSS)附近形成尖锐峰值,向基因体和上游区域逐渐衰减。该结果说明DNMT3A作为从头甲基化酶,其催化活性优先靶向调控序列密集区域,与TET去甲基化酶在这些区域的活性形成动态对立,共同维持CpG岛的甲基化平衡。
结果6|DNMT3A在主要卫星序列(major satellites)上表现出最强的富集,提示其在着丝粒异染色质甲基化中的关键作用
在基因组元件富集分析的基础上,作者进一步对卫星序列区域进行了专项富集检测。结果显示,主要卫星序列(major satellites)是DNMT3A催化活性的最强靶标,其富集程度(odds ratio)在所有基因组元件中最高,而次要卫星序列(minor satellites)的富集则非常微弱。这一发现与DNMT3A在CpG岛和启动子区域的富集形成互补,提示DNMT3A不仅参与基因调控区域的甲基化建立,更在着丝粒周围异染色质的表观遗传身份塑造中发挥核心作用。考虑到主要卫星序列是着丝粒功能的关键组成部分,作者认为DNMT3A通过维持这些重复序列的DNA甲基化,可能参与调控染色体分离的稳定性及异染色质结构的建立,这一功能与DNMT1的维持性甲基化形成协同分工。
结果7|与先前报道相反,DNMT3A在体内对CpG侧翼序列无显著偏好(-4到+3窗口)
为探究DNMT3A是否具有序列特异性的催化偏好,作者对Dnmt-TOP-seq中鉴定的独特CpG位点进行了侧翼序列分析,在-4到+3窗口内构建序列logo,并与DNMT1的催化图谱进行平行比较。结果显示,DNMT3A在体内对CpG侧翼序列未表现出任何显著的核苷酸偏好,其序列logo呈现均匀分布,与DNMT1的催化特征一致。这一发现与先前基于体外生化实验或过表达系统报道的DNMT3A侧翼序列偏好(如对CpG上游嘧啶或下游嘌呤的倾向)形成鲜明对比。作者认为,在接近生理条件的活细胞环境中,DNMT3A的催化选择性主要由染色质环境和蛋白质相互作用所引导,而非内在的序列识别;先前体外观察到的偏好可能源于非生理条件下的底物构象差异,而非酶的内在催化特性。
04 深度解读与讨论:DNMT3A的“战场”在哪里?
【解读观点】这项研究的核心价值不在于“又画了一张甲基化图谱”,而在于它第一次把“催化活性”从“甲基化状态”中解耦出来。传统WGBS看到的是所有DNMT和TET酶博弈后的平衡结果,而Dnmt-TOP-seq看到的是DNMT3A“正在干活”的地方。这种时空分辨率的提升,让研究者能直接观察DNMT3A在基因组上的“主战场”。
【解读观点】最有趣的发现是DNMT3A在主要卫星序列(major satellites)上的显著富集。这提示DNMT3A不仅是启动子/CpG岛的“修饰工”,更可能是着丝粒异染色质身份建立的关键角色。这与DNMT3B在ICF综合征中着丝粒不稳定性的表型相互印证,暗示DNMT3A和3B在卫星序列上可能存在功能分工或协同。
【解读观点】DNMT3A在CpG岛边界和增强子区域的富集,与TET酶的活性区域形成对立,提示这些区域的甲基化状态可能是一个动态平衡过程——DNMT3A写入、TET擦除,共同调控增强子的活性状态。这种“写入-擦除”的动态模型,比静态的甲基化图谱更能解释发育过程中的表观遗传重编程。
【解读观点】值得注意的是,本研究未发现DNMT3A在体内的侧翼序列偏好(-4到+3窗口),这与体外研究报道的偏好不一致。这可能反映了体内染色质环境(核小体定位、组蛋白修饰)对DNMT3A靶向的dominant作用,超过了其固有的序列偏好。
05 局限与展望:工程改造的代价与未解之谜
尽管研究设计精巧,但存在若干局限 [Discussion]:
工程改造的生理代价:Dnmt3aR887G突变导致基因组m5C水平比WT降低约20%,可能影响甲基化状态的生理真实性,部分表型可能反映的是“低甲基化背景下的DNMT3A行为”而非正常状态。
标记密度限制:TOP-seq标记密度仅约0.0003%,覆盖约0.3%的基因组CpG,可能无法完全反映DNMT3A的催化全貌,尤其是低活性区域的信号可能被遗漏。
潜在的非特异性信号:在严重甲硫氨酸限制条件下,WT DNMT1可能产生非特异性标记,干扰DNMT3A信号的纯度。
未覆盖DNMT3B:本研究未构建DNMT3B的工程细胞系,无法区分DNMT3B的贡献,尤其在DNMT3A/3B共表达的区域。
非CpG位点盲区:TOP-seq技术无法检测非CpG位点的DNMT活性,而DNMT3A在mESC中对非CpG位点也有一定活性。
未来方向包括:构建DNMT3B工程细胞系、提高标记密度、结合Hi-C等三维基因组数据解析DNMT3A在空间上的靶向规律。
06 科研思路启发:如何把“酶工程”讲成一个完整的故事?
这篇论文的叙事框架非常值得借鉴,是典型的“技术驱动发现”型研究:
1. 技术瓶颈的精准定位:开篇明确指出现有甲基化测序无法区分DNMT家族成员的个体贡献,为技术开发提供了强烈的“刚需”理由。发论文时,要问自己:我的技术解决了什么“非解决不可”的问题?
2. 结构引导的理性设计:不是盲目突变筛选,而是基于DNMT3A催化口袋结构(PDB: 6w8b)进行理性设计,R887位点的选择有明确的保守性依据(Fig. 1B)。这种“结构-功能”逻辑链条,让突变体的设计有说服力。
3. 体外-体内证据链的层层递进:体外酶学(活性、选择性)→ 细胞系构建(prime editing)→ 活细胞标记(两种策略)→ 基因组图谱(TOP-seq)→ 功能富集(与WGBS/TAB-seq比较)。每一步都为下一步提供依据,没有跳跃。
4. 与已有平台的互补性叙事:将DNMT3A平台与前期DNMT1平台并置,强调“互补”而非“替代”,构建了一个系统性的工具矩阵。这种“系列工作”的叙事方式,能提升单篇论文的学术影响力。
5. 阴性结果的坦诚处理:未发现侧翼序列偏好这一阴性结果,被作为独立发现呈现,并给出了合理的解释(染色质环境主导)。这提示:阴性结果如果解释得当,同样能成为论文的亮点。
金句
当WGBS只能看到甲基化的“合影”时,Dnmt-TOP-seq让DNMT3A的“个人行动轨迹”首次清晰可见——原来它最活跃的战场,不在基因启动子,而在着丝粒的卫星序列上。