
嗅球状细胞通过味觉信号通路守护嗅觉:Gγ13/Trpm5缺失如何加剧流感后的炎症与损伤?
本文是对2026年发表于《Cell Prolif》的一项临床前研究的解读,属科研资讯分享,不构成任何诊疗建议。嗅觉黏膜里那帮不起眼的tuft细胞,居然靠味觉信号通路管着干细胞休眠和炎症稳态,流感一来还直接调控修复节奏。这思路挺巧,值得一读。
期刊:Cell Proliferation(IF: 7.6,Q1)
发表时间:2026年9月19日
原文标题:Olfactory Tuft Cells Are Critical to Basal Inflammation, Innate Immune Response to Viral Infection, and Modulation of Quiescent Stem Cell Activation, Proliferation and Differentiation.
翻译标题:嗅球状细胞通过味觉信号通路守护嗅觉:Gγ13/Trpm5缺失如何加剧流感后的炎症与损伤?
研究设计:基础科学研究(转基因小鼠、病毒感染模型、离体类器官培养)
样本量:每组至少3只小鼠(n≥3);类器官实验n=3(独立实验)
主要结局:嗅黏膜炎症状态、细胞焦亡、嗅球状细胞增生、水平基底细胞(HBC)激活与分化
全文技术路线图
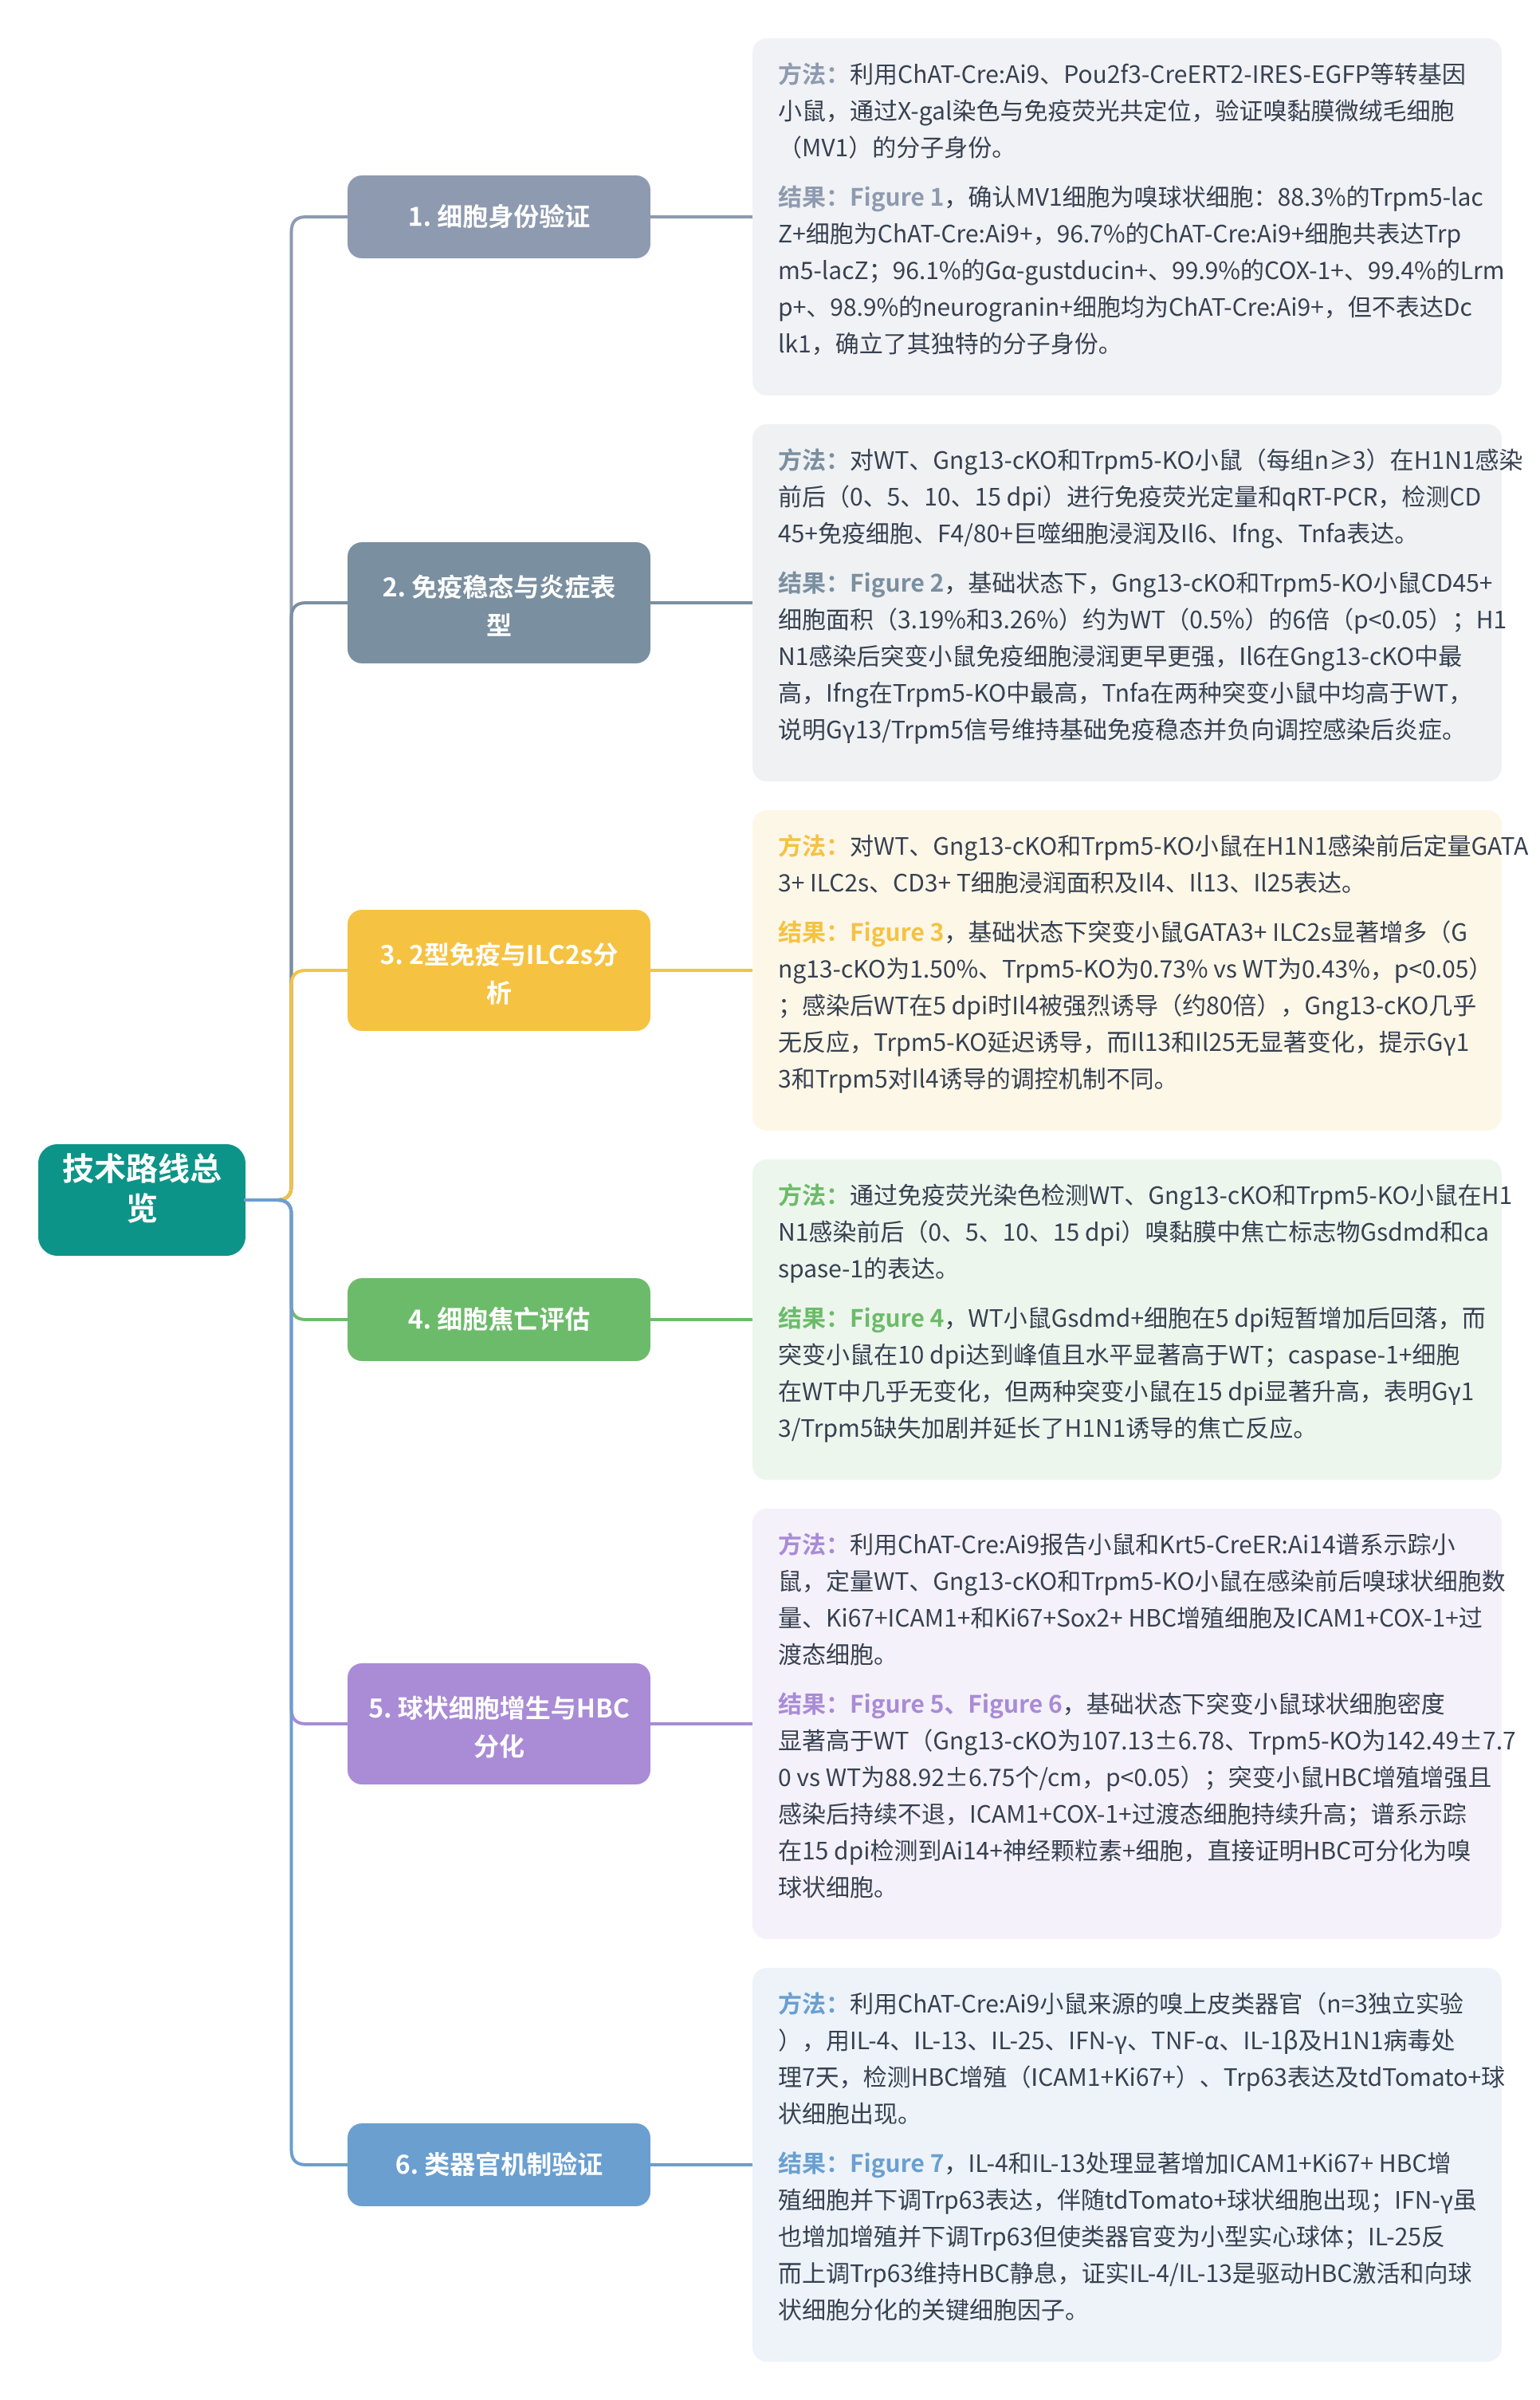
研究背景与科学问题
嗅觉系统不仅是感知气味的重要感官,其黏膜还承担着免疫防御和干细胞再生的关键功能。嗅黏膜中的水平基底细胞(HBC)作为干细胞,在损伤后负责再生嗅上皮,但其静息态的维持机制尚不明确。近年研究发现,嗅球状细胞(microvillous cells, MV1)表达味觉信号通路的关键分子——Gγ13和Trpm5,这些分子在味觉细胞中介导苦味、甜味等化学信号的转导。然而,嗅球状细胞是否通过该通路参与嗅黏膜的免疫稳态和干细胞调控,此前从未被探索。本研究利用转基因小鼠和类器官模型,系统回答了这一问题。
研究方法:从体内模型到离体验证
研究者构建了Gng13-cKO(条件敲除)和Trpm5-KO(全敲除)小鼠,并通过H1N1流感病毒感染建立嗅黏膜损伤模型。在感染后0、5、10、15天(dpi)收集嗅黏膜组织,进行免疫荧光染色、qRT-PCR和组织学分析。同时,建立了嗅上皮类器官培养体系,从嗅黏膜分离干细胞,在3D基质胶中培养7天形成球体,再用H1N1病毒及多种细胞因子(IL-4、IL-13、IFN-γ、TNF-α、IL-1β、IL-25)处理7天,以模拟体内炎症环境。类器官实验用于验证Gγ13/Trpm5缺失对干细胞增殖和分化的直接影响。
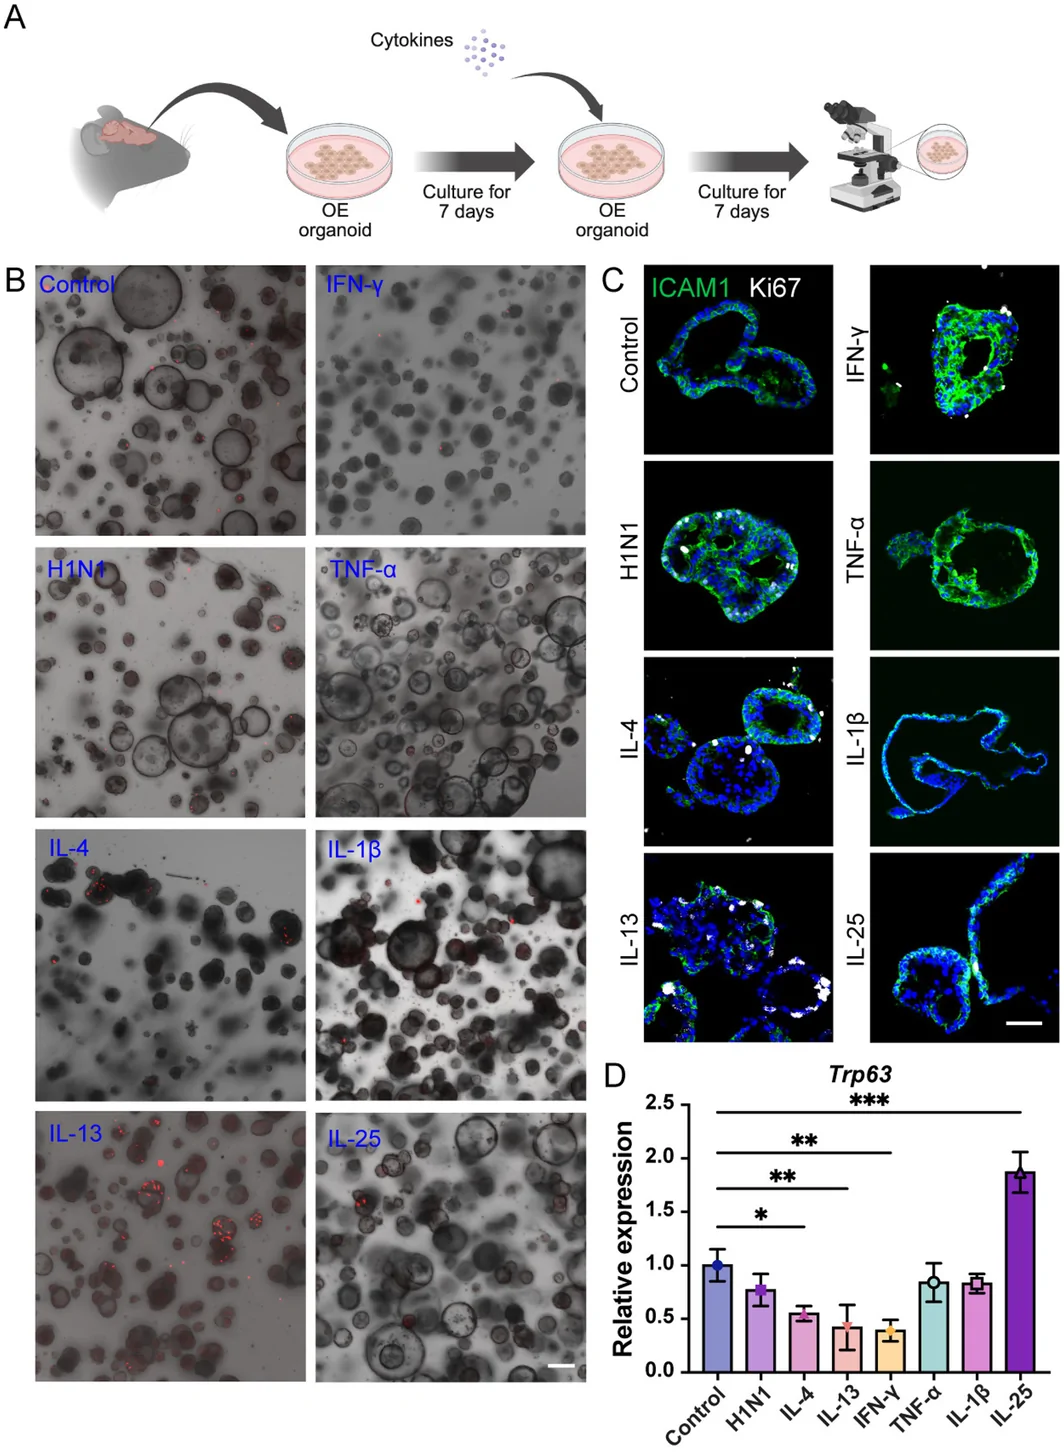
FIGURE 7 这是一张实验流程图,展示了嗅上皮类器官从培养到细胞因子处理的完整流程。图中清晰标注了类器官培养7天形成球体后,再用H1N1病毒及IL-4、IL-13、IFN-γ、TNF-α、IL-1β、IL-25等细胞因子处理7天的步骤。该图帮助读者理解离体验证实验的设计逻辑,为后续类器官结果提供方法学支撑。
核心发现:Gγ13/Trpm5缺失破坏免疫稳态与干细胞调控
首先,研究者确认了嗅球状细胞的分子身份(图1)。通过X-gal染色与tdTomato荧光共定位,以及多种标记蛋白(Gα-gustducin、COX-1、Lrmp、neurogranin、Pou2f3)的免疫荧光染色,证实MV1细胞即为嗅球状细胞,且表达完整的味觉信号通路。
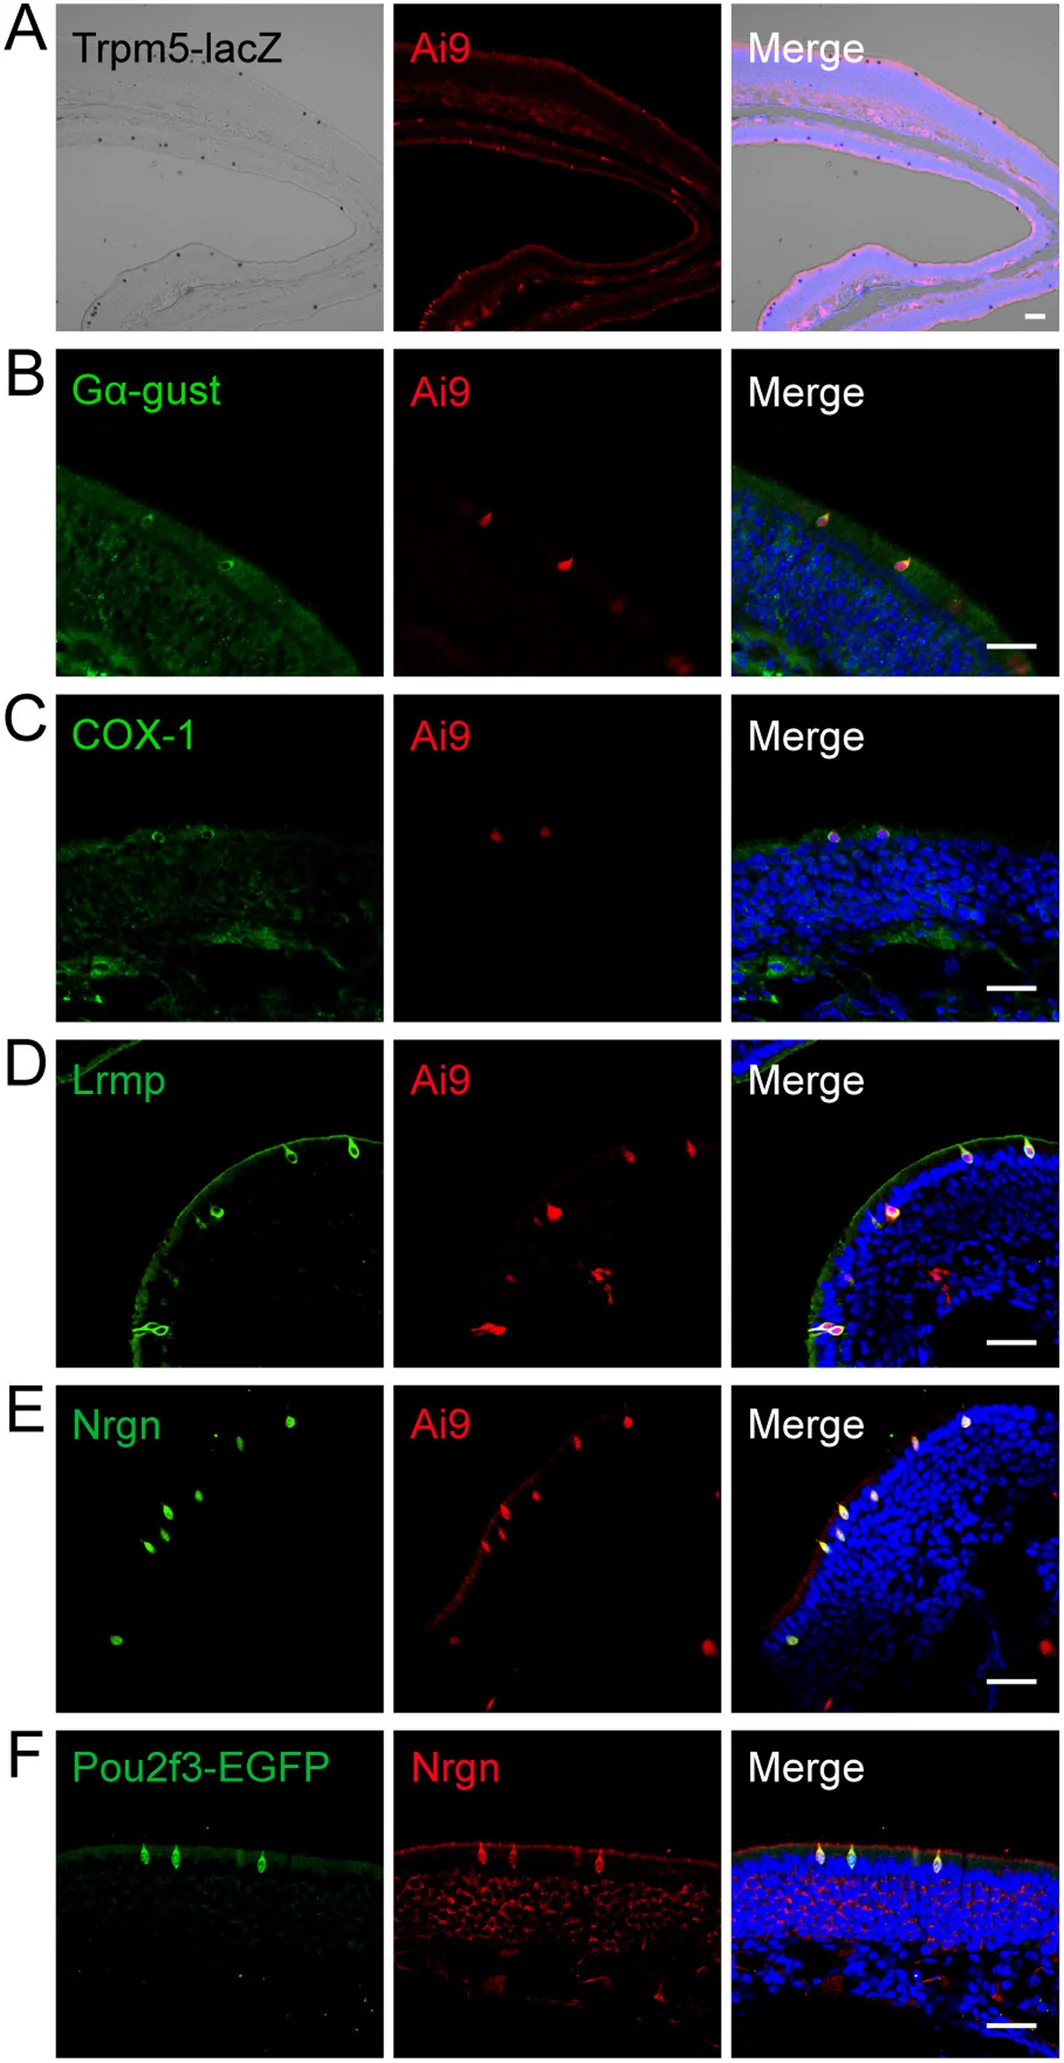
FIGURE 1 这是一张免疫荧光共定位图,通过X-gal染色(蓝色)与tdTomato荧光(红色)共定位,以及多种标记蛋白(Gα-gustducin、COX-1、Lrmp、neurogranin、Pou2f3)的免疫荧光染色,直观展示了嗅球状细胞(ChAT-Cre:Ai9+或Pou2f3-EGFP+)的分子特征。图中可见几乎所有标记物阳性细胞都与Ai9或EGFP共定位,证实MV1细胞即为嗅球状细胞。该图是全文的细胞学基础,为后续功能研究提供了身份验证。
在基础状态下,Gng13-cKO和Trpm5-KO小鼠的嗅黏膜中CD45+免疫细胞和F4/80+巨噬细胞浸润面积显著高于WT(约6倍),且促炎细胞因子Il6、Ifng、Tnfa的mRNA表达水平升高(图2)。H1N1感染后,突变小鼠的免疫细胞浸润更早更强,炎症反应显著放大。
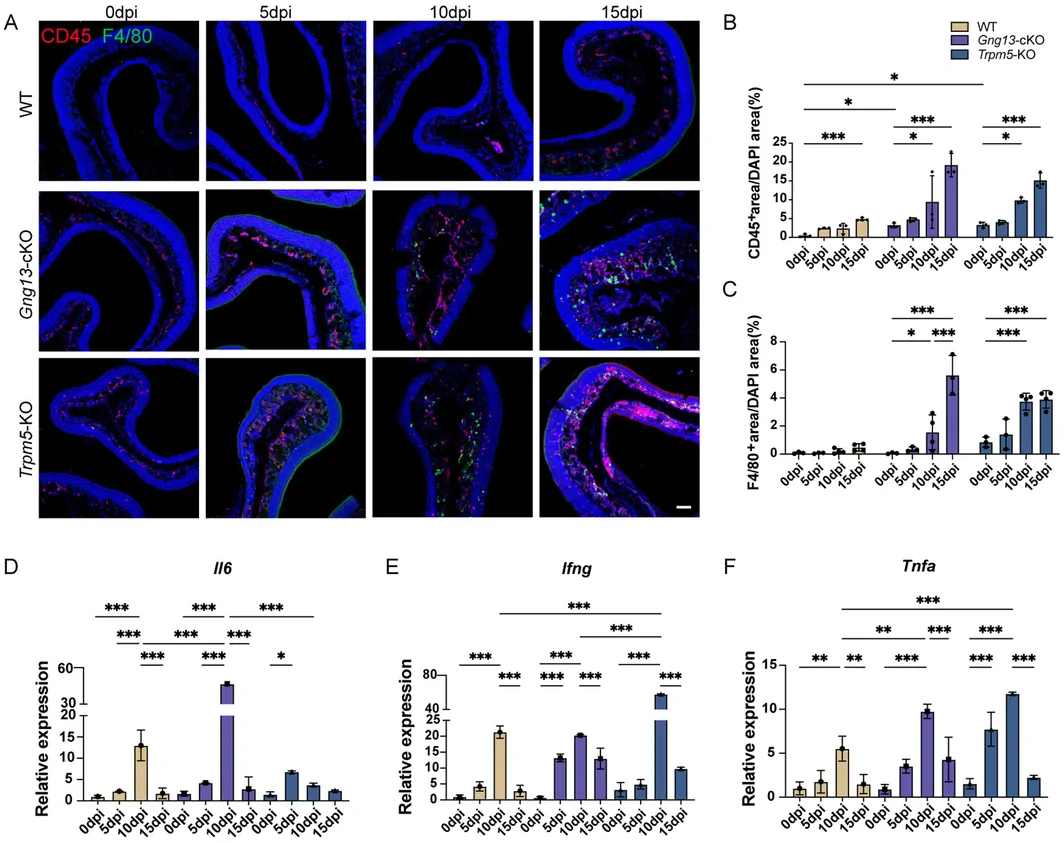
FIGURE 2 这是一张免疫荧光定量图结合qRT-PCR柱状图,展示了WT、Gng13-cKO和Trpm5-KO小鼠在H1N1感染前后(0、5、10、15 dpi)嗅黏膜中CD45+免疫细胞和F4/80+巨噬细胞的浸润面积,以及Il6、Ifng、Tnfa的mRNA表达水平。图中可见基础状态下突变小鼠CD45+细胞面积显著高于WT(约6倍),感染后突变小鼠的免疫细胞浸润更早更强,且Il6在Gng13-cKO中最高、Ifng在Trpm5-KO中最高。该图直接证明了Gγ13/Trpm5信号缺失导致基础免疫稳态破坏和感染后炎症放大。
进一步分析显示,突变小鼠中GATA3+ ILC2s和CD3+ T细胞浸润增强,且Il4的诱导模式发生基因型特异性改变:WT在5 dpi时Il4被强烈诱导(约80倍),Gng13-cKO几乎无反应,Trpm5-KO则延迟出现(图3)。这提示Gγ13和Trpm5在2型免疫调控中具有差异作用。
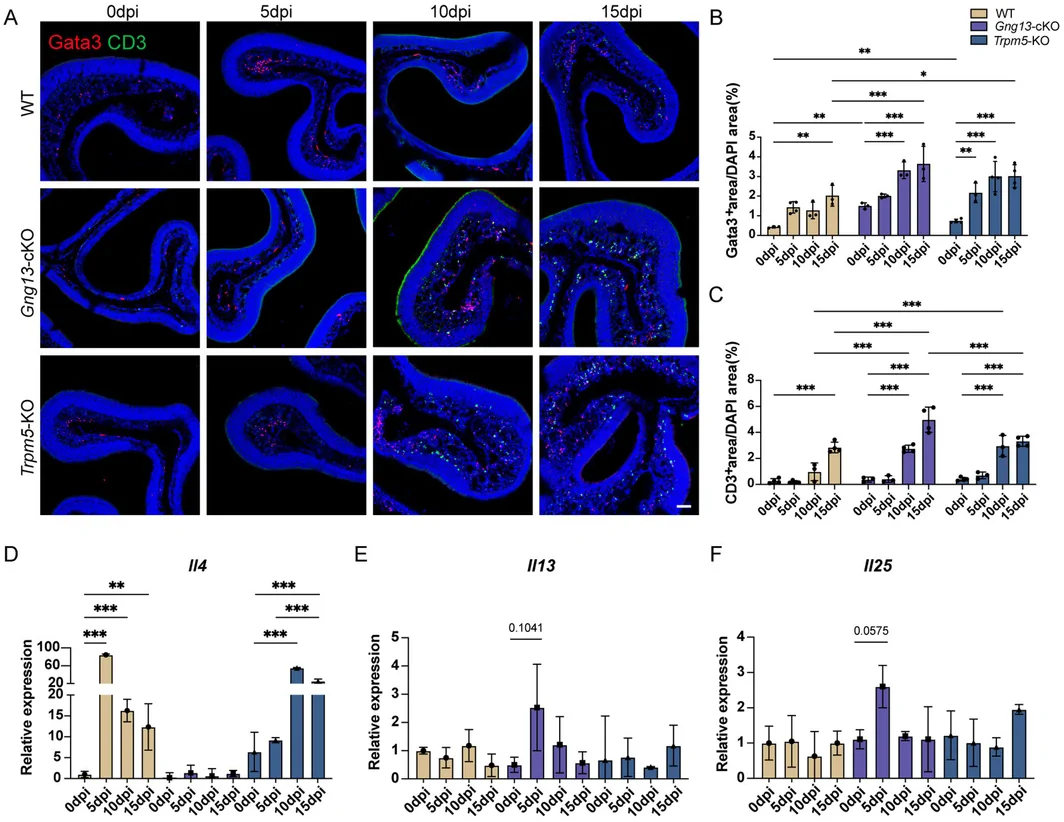
FIGURE 3 这是一张免疫荧光定量图结合qRT-PCR柱状图,展示了GATA3+ ILC2s和CD3+ T细胞在嗅黏膜中的浸润面积,以及Il4、Il13、Il25的mRNA表达变化。图中可见基础状态下突变小鼠GATA3+ ILC2s显著多于WT,感染后突变小鼠的ILC2s和T细胞反应更早更强。特别值得注意的是Il4的表达模式:WT在5 dpi时被强烈诱导(约80倍),Gng13-cKO几乎无反应,Trpm5-KO则延迟出现,而Il13和Il25无显著变化。该图揭示了Gγ13和Trpm5在2型免疫调控中的差异作用。
炎症的加剧最终导致细胞焦亡增加。WT小鼠在5 dpi时Gsdmd+细胞短暂增加后迅速回落,而突变小鼠在10 dpi才达到峰值且水平显著更高;caspase-1+细胞在WT中几乎无变化,但突变小鼠在15 dpi显著升高(图4)。
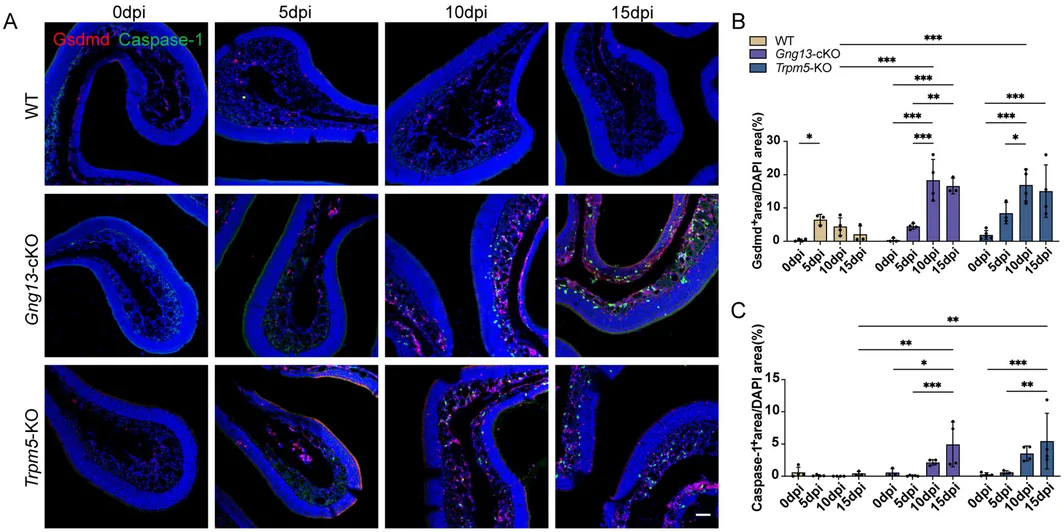
FIGURE 4 这是一张免疫荧光定量图,展示了WT、Gng13-cKO和Trpm5-KO小鼠在H1N1感染前后Gsdmd+和caspase-1+焦亡细胞的面积变化。图中可见WT小鼠在5 dpi时Gsdmd+细胞短暂增加后迅速回落,而突变小鼠在10 dpi才达到峰值且水平显著更高;caspase-1+细胞在WT中几乎无变化,但突变小鼠在15 dpi显著升高。该图证明Gγ13/Trpm5缺失不仅放大了焦亡强度,还延长了焦亡持续时间,是炎症损伤加重的重要下游事件。
在干细胞层面,基础状态下突变小鼠的嗅球状细胞密度显著高于WT(Gng13-cKO为107.13±6.78个/cm,Trpm5-KO为142.49±7.70个/cm,WT为88.92±6.75个/cm),感染后WT在10 dpi短暂扩增后回落,Gng13-cKO缓慢持续增加,Trpm5-KO无进一步显著增加(图5)。同时,HBC增殖(Ki67+ICAM1+、Ki67+Sox2+)和向球状细胞分化(ICAM1+COX-1+)在突变小鼠中显著增强,且感染后下降缓慢(图6)。
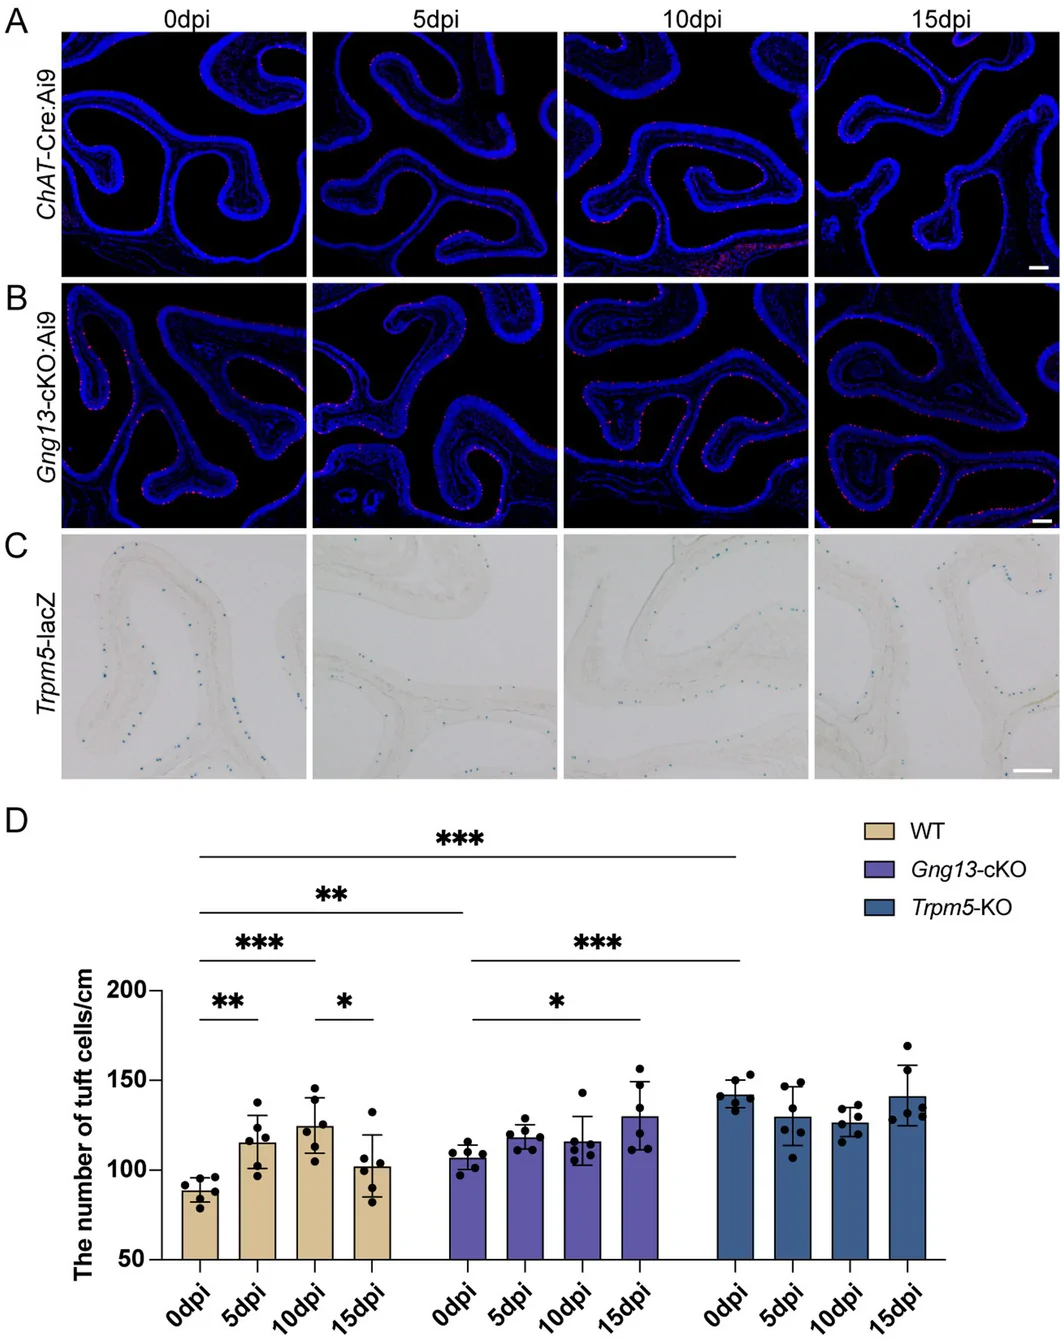
FIGURE 5 这是一张免疫荧光/组织化学染色定量图,展示了WT(ChAT-Cre:Ai9)、Gng13-cKO:Ai9和Trpm5-KO(Trpm5-lacZ)小鼠在H1N1感染前后嗅球状细胞数量的变化。图中可见基础状态下突变小鼠球状细胞密度显著高于WT(Gng13-cKO为107.13±6.78个/cm,Trpm5-KO为142.49±7.70个/cm,WT为88.92±6.75个/cm),感染后WT在10 dpi短暂扩增后回落,Gng13-cKO缓慢持续增加,Trpm5-KO无进一步显著增加。该图证明Gγ13/Trpm5信号缺失导致球状细胞增生,且感染后增生动力学改变。
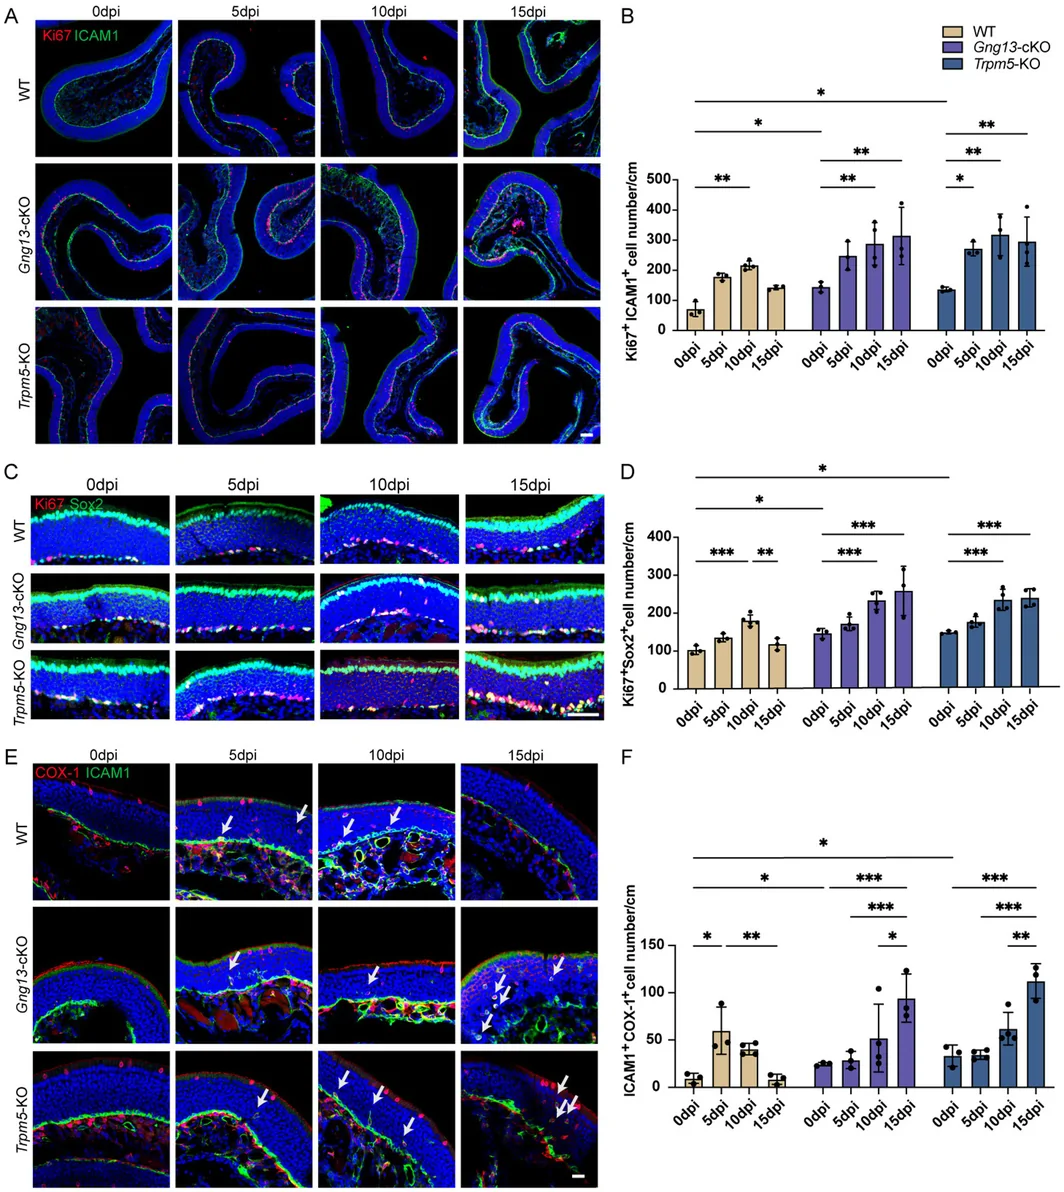
FIGURE 6 这是一张免疫荧光定量图,展示了HBC增殖(Ki67+ICAM1+、Ki67+Sox2+)和HBC向球状细胞分化(ICAM1+COX-1+)的细胞数量变化。图中可见基础状态下突变小鼠的Ki67+ICAM1+和Ki67+Sox2+细胞显著多于WT,感染后WT在10 dpi达峰后快速下降,而突变小鼠下降缓慢;ICAM1+COX-1+过渡态细胞在突变小鼠中基础水平更高,感染后持续升高。该图将HBC增殖与球状细胞增生因果串联,证明Gγ13/Trpm5缺失打破HBC静息态制动机制。
科研思路启发
本研究提供了一个极佳的科研范式:从味觉信号通路这一“非典型”角度切入嗅觉系统,通过基因敲除小鼠和类器官模型层层递进,揭示了细胞类型特异性的免疫-干细胞互作机制。其思路启发在于:1)关注罕见细胞类型(如嗅球状细胞)的独特分子特征,可能发现意想不到的生理功能;2)将已知信号通路(味觉)跨器官迁移,探索其在其他组织中的新角色;3)结合体内感染模型与离体类器官,实现从现象到机制的闭环验证;4)关注基础免疫稳态与损伤后再生之间的平衡,为再生医学提供新靶点。
金句
本研究首次揭示嗅球状细胞通过Gγ13/Trpm5味觉信号通路维持嗅黏膜免疫稳态与干细胞静息。该通路缺失导致基础炎症升高、H1N1感染后免疫细胞浸润和细胞焦亡显著加剧,同时打破HBC静息态,引发球状细胞过度增生。这一发现为嗅觉障碍的干预提供了全新靶点。