
单剂吸入式rAAV/DJ猴痘疫苗:在小鼠与猕猴中诱导持久黏膜免疫并保护正痘病毒攻击
本文是对2026年发表于《Cell Rep Med》的一项临床前研究的解读,属科研资讯分享,不构成任何诊疗建议。这篇工作最抓人的地方在于,它把疫苗做成了吸入式的单剂方案——用rAAV/DJ载体在肺部持续表达猴痘抗原,小鼠和猕猴身上一次给药就能撑起一年以上的抗体和黏膜T细胞应答,而且对多种正痘病毒攻毒都有保护。做疫苗的人都知道,黏膜免疫和依从性一直是两道坎,这个平台等于同时踹开了两扇门。
期刊:Cell Reports Medicine(IF: 14.0,Q1)
发表时间:2026年9月15日
原文标题:A single-dose inhalable rAAV-vectored vaccine against mpox virus.
翻译标题:单剂吸入式rAAV/DJ猴痘疫苗:在小鼠与猕猴中诱导持久黏膜免疫并保护正痘病毒攻击
研究设计:临床前实验研究,包含小鼠和非人灵长类(猕猴)模型
样本量:BALB/c小鼠(每组n=4-6免疫原性,n=5攻毒);CAST/EiJ小鼠(每组n=6-9);猕猴(n=3)
干预:单剂肺内(气管内)免疫rAAV/DJ载体猴痘疫苗MV-A、MV-B或MV-C(小鼠剂量1×10^11 vg,猕猴剂量1×10^12 vg)
主要结局:针对VACV-WR和MPXV clade IIb攻击的保护效力(体重变化、病毒载量、组织病理)
全文技术路线图
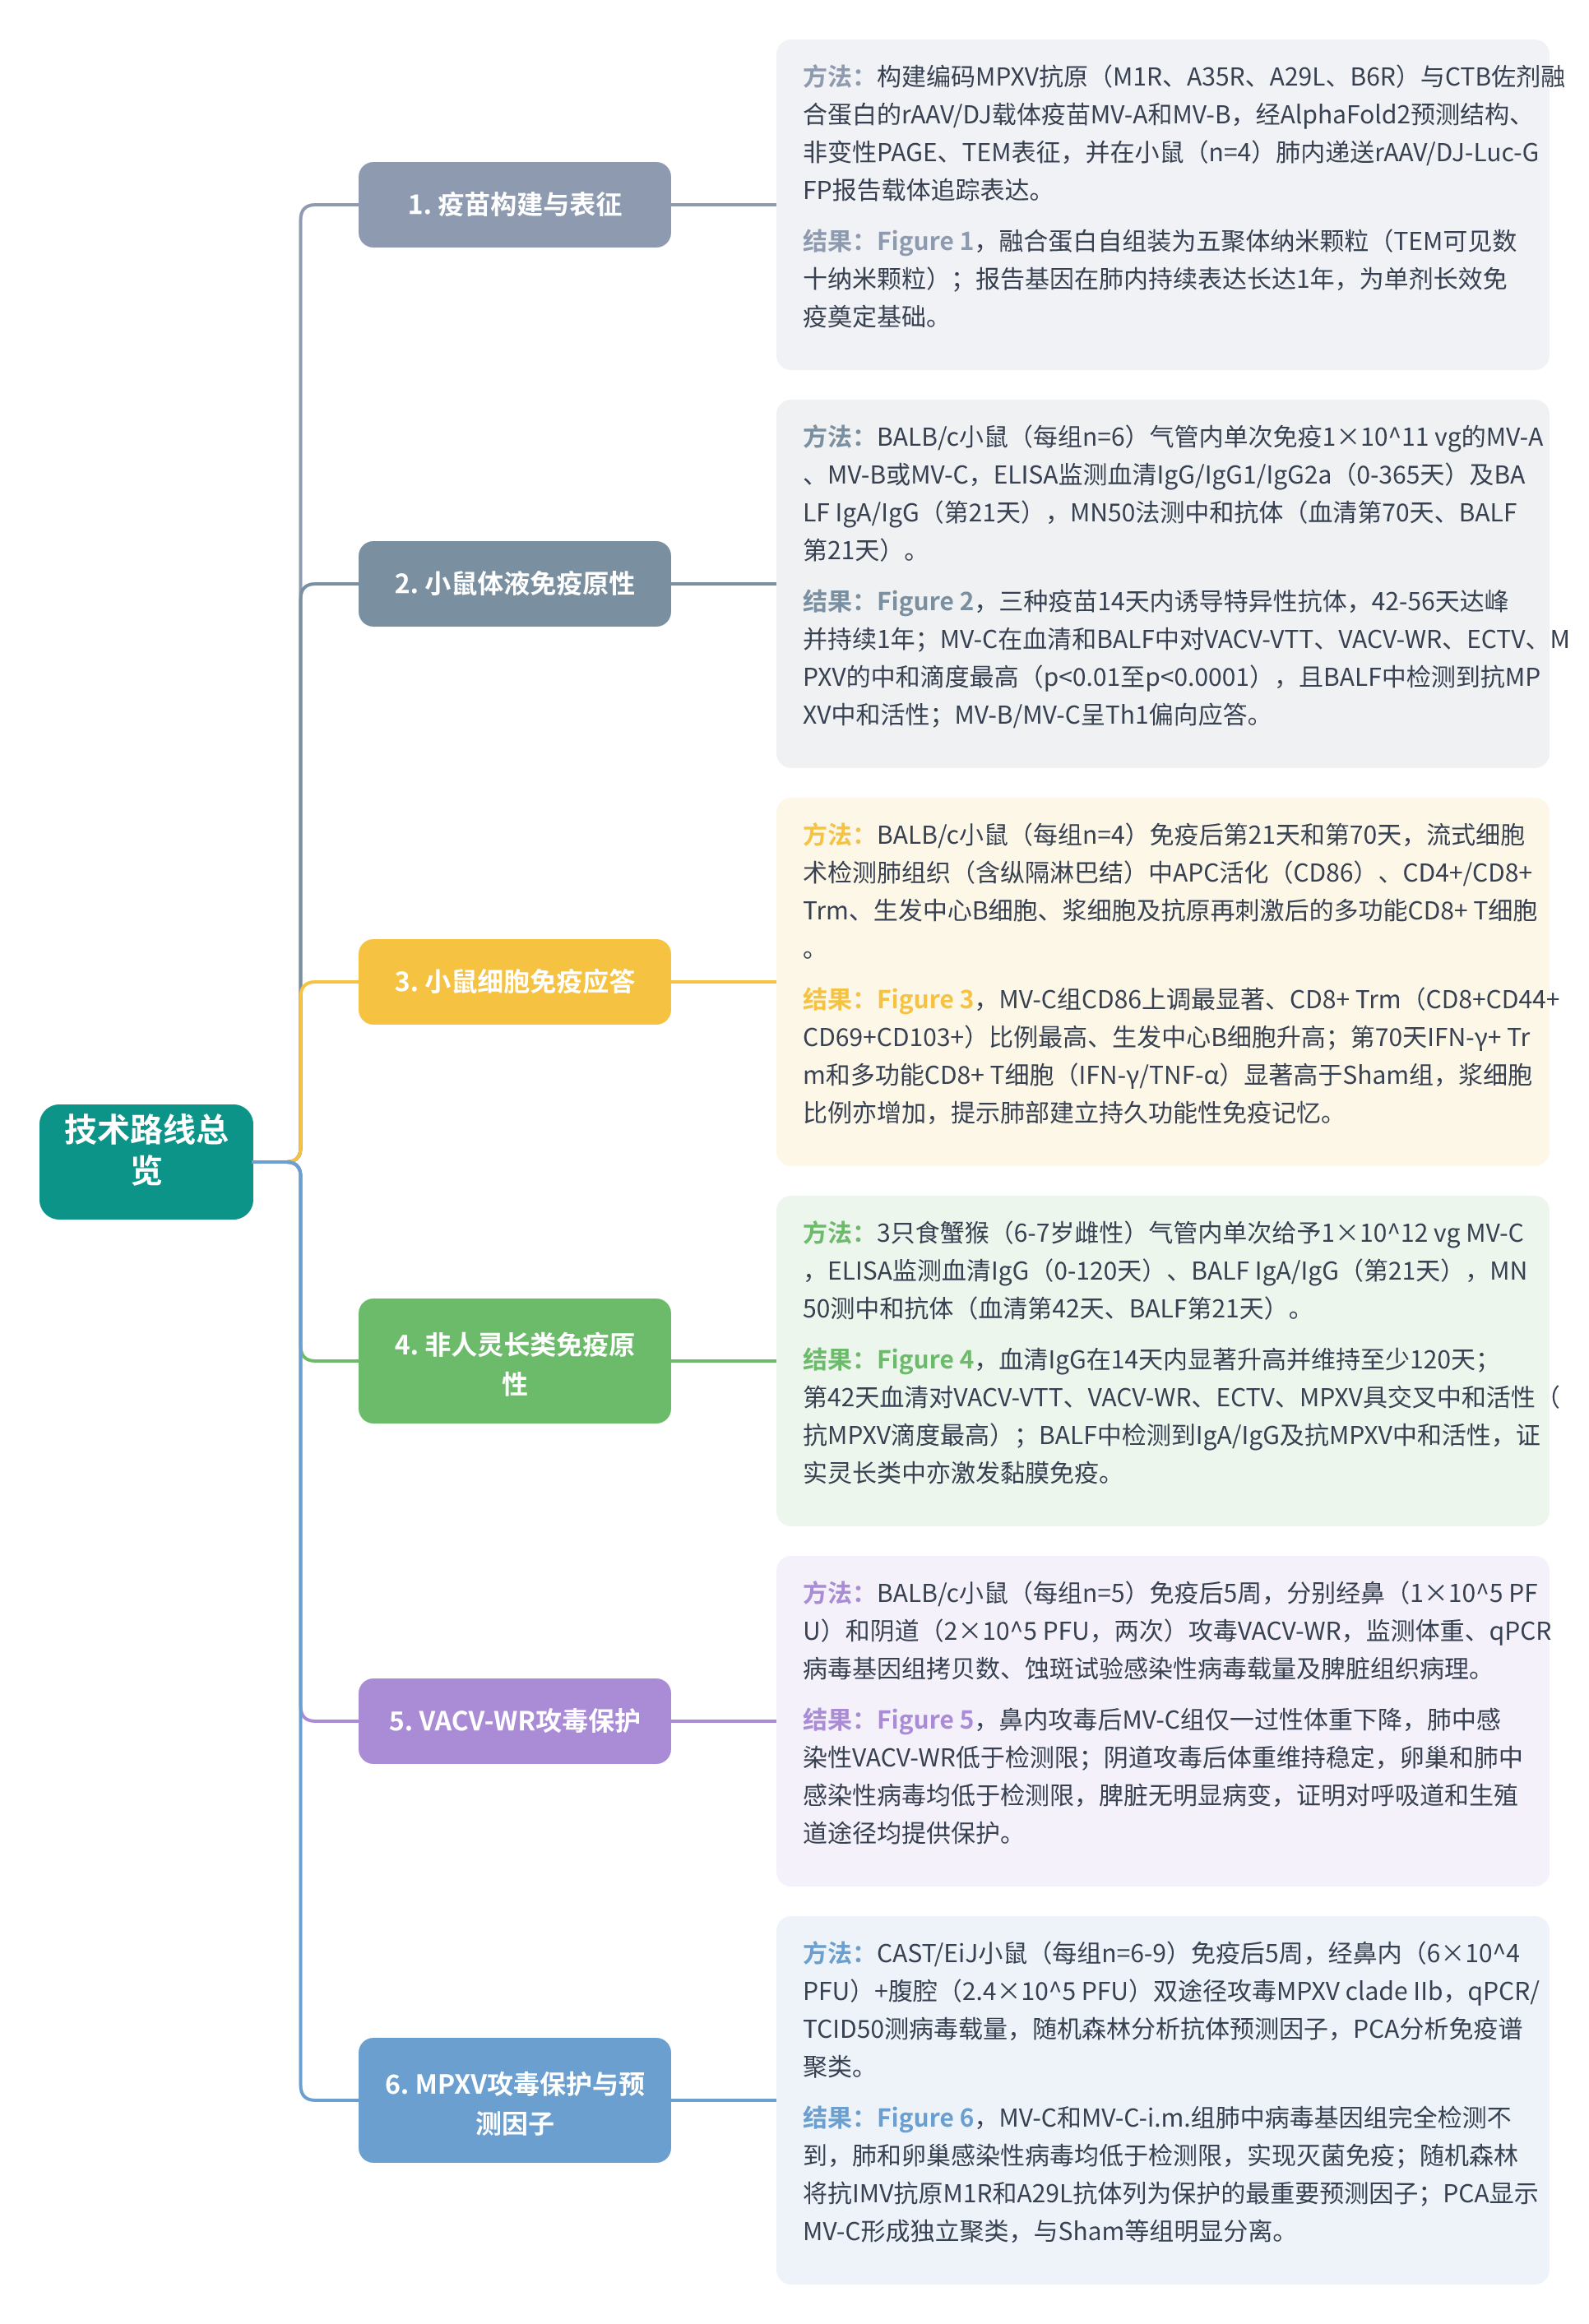
01 研究背景与科学问题
2022年爆发的猴痘(mpox)疫情波及全球多个国家,世界卫生组织宣布其为国际关注的突发公共卫生事件。尽管已有天花疫苗(如VACV-based vaccines)被紧急用于暴露后预防,但现有疫苗存在明显局限:需要多次接种、皮内或皮下注射操作复杂、对黏膜入侵的病毒(尤其是通过呼吸道和生殖道传播的正痘病毒)诱导的黏膜免疫有限 [Introduction]。
黏膜表面是正痘病毒入侵的主要门户,而肺部作为吸入性疫苗的理想靶点,能够同时激活局部和全身免疫。然而,如何实现单剂接种即产生持久且广谱的保护性免疫,仍是该领域的核心挑战。本研究基于重组腺相关病毒(rAAV)载体平台,设计了一种可通过吸入给药的单剂猴痘疫苗,旨在解决上述问题。
02 数据来源与方法:从载体设计到多模型验证
研究者构建了两种重组rAAV/DJ载体疫苗:MV-A(编码M1R-A35R-CTB融合蛋白)和MV-B(编码A29L-B6R-CTB融合蛋白),其中M1R、A35R、A29L和B6R均为MPXV的免疫优势抗原,CTB(霍乱毒素B亚单位)作为黏膜佐剂 [Methods]。MV-C则为MV-A和MV-B的等量混合物。
免疫策略采用单剂气管内(pulmonary)给药,在BALB/c小鼠(6-8周龄)、CAST/EiJ小鼠(MPXV易感品系,5-8周龄)和猕猴(6-7岁)中评估免疫原性;攻毒实验使用VACV-WR(经鼻和阴道途径)和MPXV clade IIb(双途径:鼻内+腹腔)。对照组包括空载体(Sham)、VACV-VTT尾痕接种(阳性对照)和LNP-mRNA四价疫苗 [Methods]。
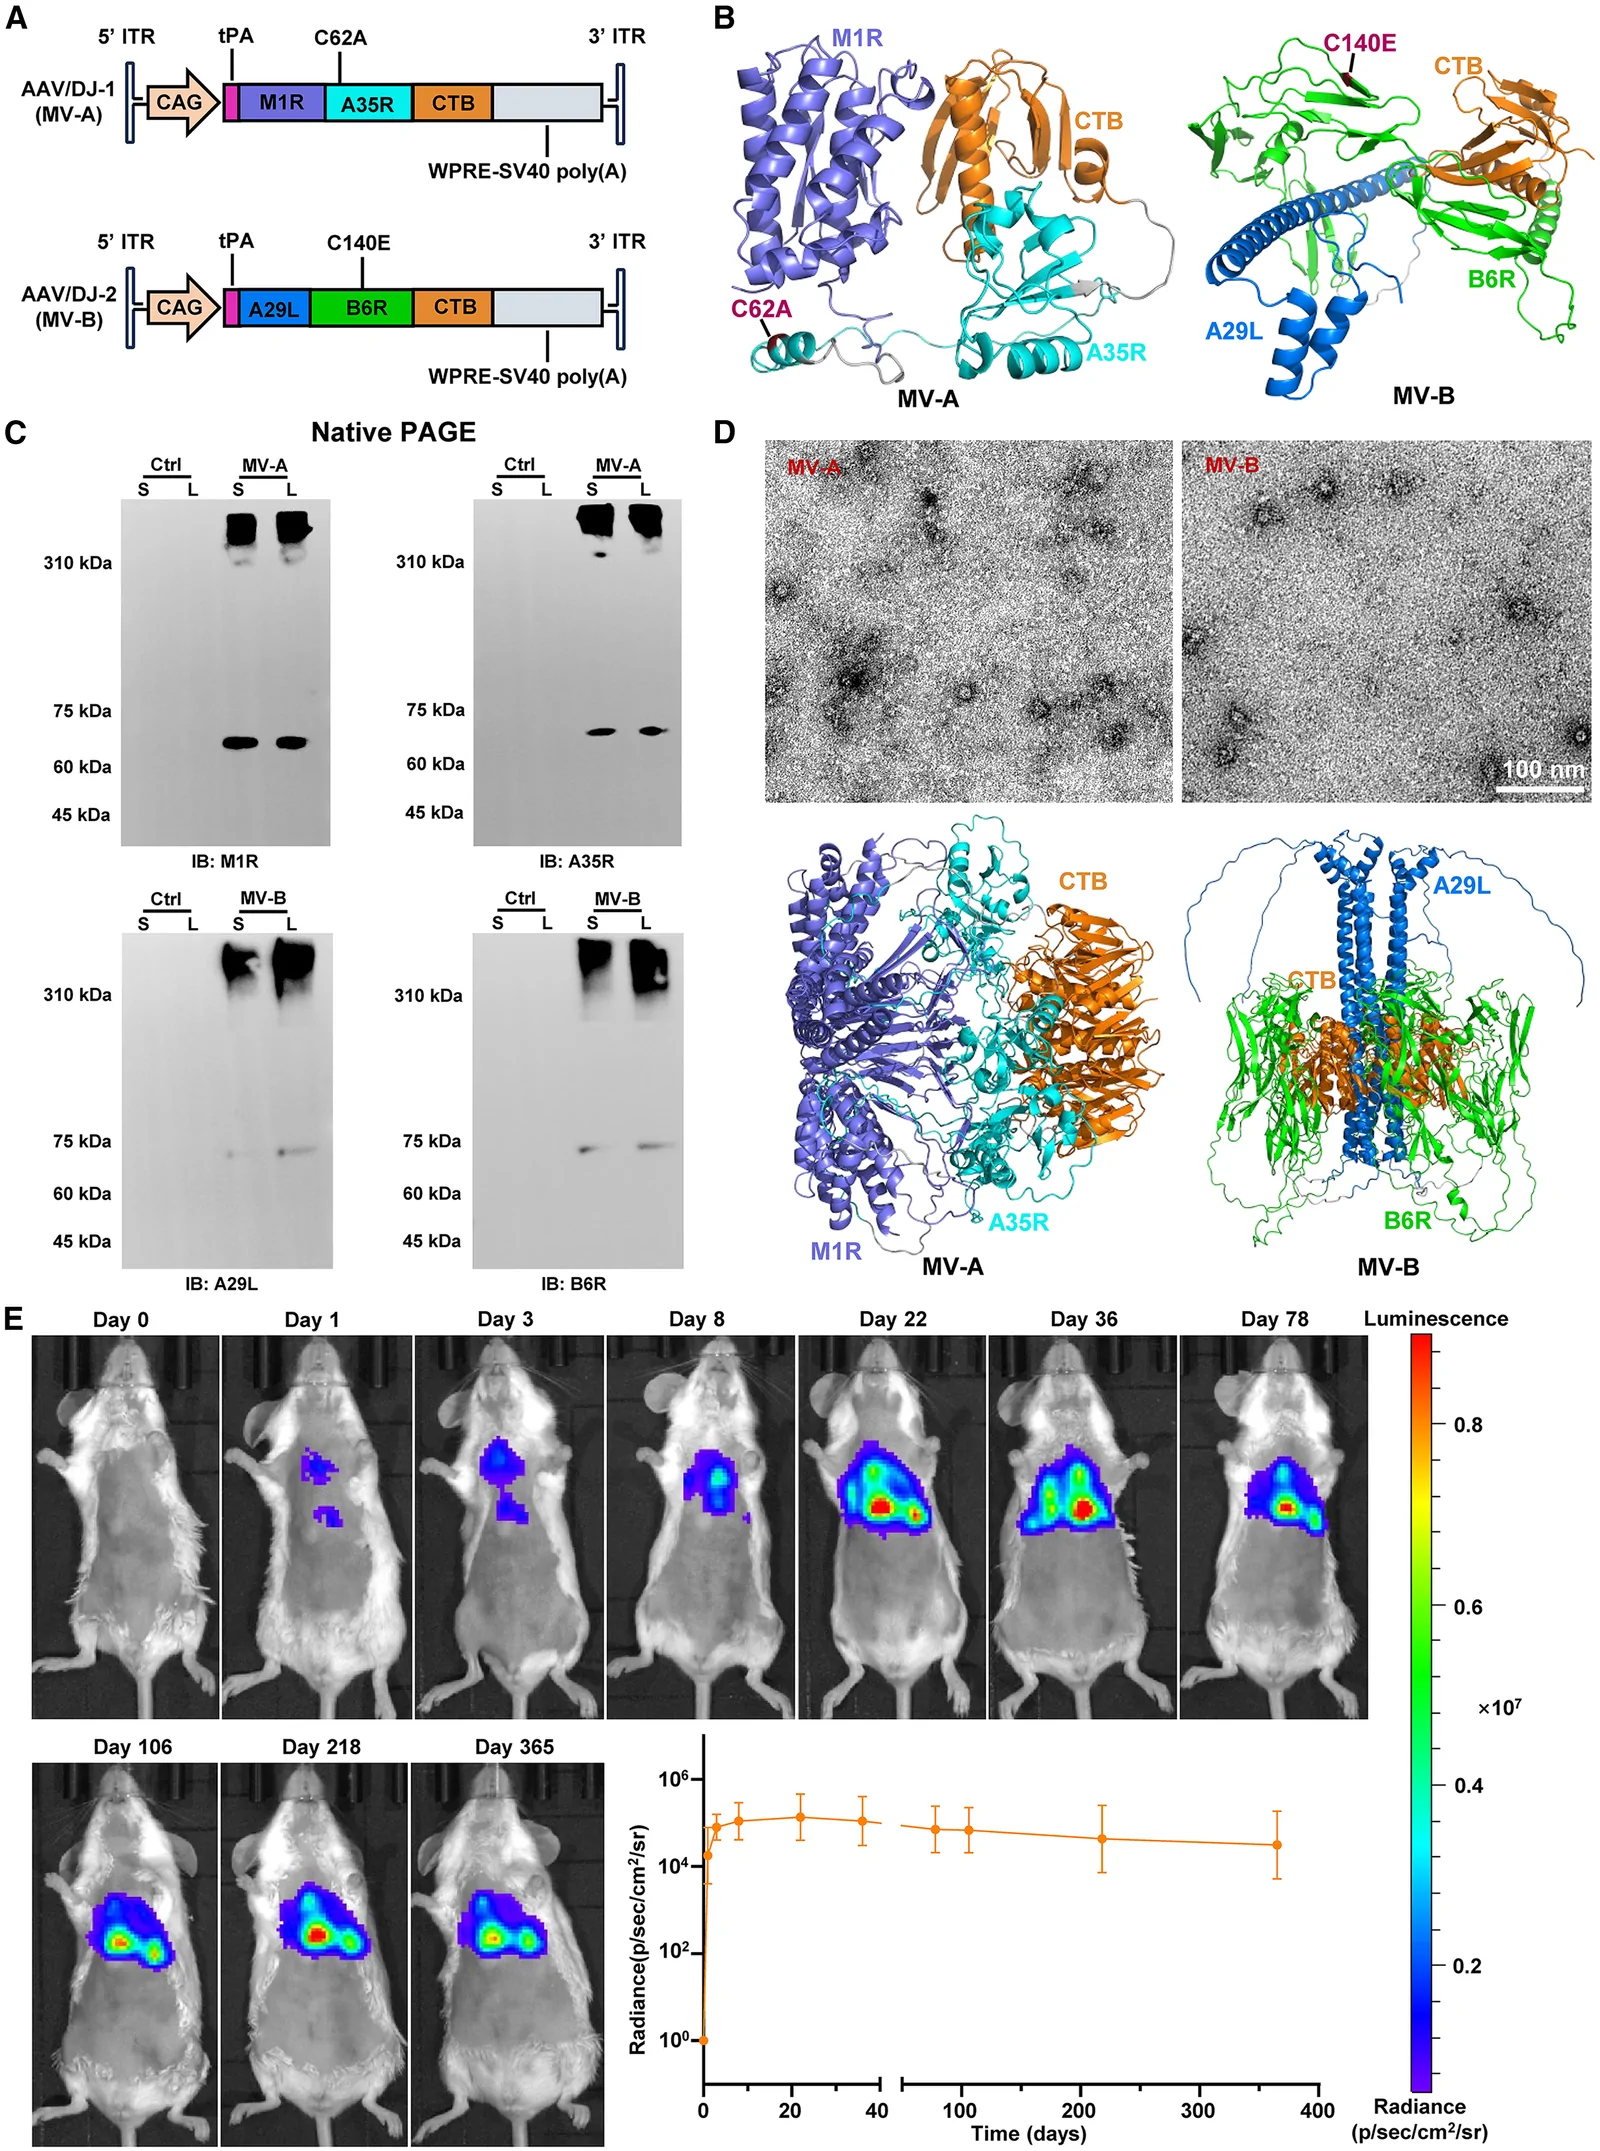
Figure 1 这张图是疫苗设计的核心示意图,包含重组基因组结构(A)、AlphaFold2预测的融合蛋白五聚体结构(B)、非变性PAGE检测抗原表达(C)、TEM纳米颗粒形态(D)以及肺内递送后长达1年的活体生物发光成像(E)。读图时重点关注A面板的载体元件组成和E面板的荧光信号持续性,这直接支撑了“单剂接种即可长效表达”的核心设计理念。该图是全文疫苗构建与平台验证的证据基石。
03 研究结果:从载体构建到多模型保护性验证
本研究系统展示了吸入式rAAV/DJ猴痘疫苗从设计、免疫原性评估到保护效力验证的完整证据链,核心发现是单剂MV-C可在小鼠和猕猴中诱导持久、广谱的黏膜和系统免疫,并在多种正痘病毒攻毒模型中提供保护。
板块1|疫苗构建与表征:MV-A和MV-B表达自组装纳米颗粒抗原,rAAV/DJ载体在肺内长期表达
结果1|MV-A和MV-B表达抗原-佐剂融合蛋白并自组装成五聚体纳米颗粒,rAAV/DJ介导的报告基因在肺内持续表达长达1年
作者将猴痘病毒(MPXV)的四种抗原——M1R、A35R(构建于MV-A)与A29L、B6R(构建于MV-B)——分别与N端组织型纤溶酶原激活剂(tPA)信号肽及C端黏膜佐剂霍乱毒素B亚基(CTB)融合,克隆入rAAV/DJ载体(图1A)。通过AlphaFold2预测,这些融合蛋白可形成五聚体结构(图1B);在感染MV-A或MV-B的A549细胞中,作者采用非变性PAGE结合western blot检测到上清与裂解液中均存在对应的高分子量复合物条带(图1C),透射电镜(TEM)则清晰显示直径约数十纳米的分散良好颗粒(图1D),证实抗原-佐剂融合蛋白在表达后自发组装为五聚体纳米颗粒。随后,作者通过肺内递送rAAV/DJ-Luc-GFP报告载体(n=4只小鼠),利用活体生物发光成像追踪表达动力学,结果显示荧光信号在递送后持续存在,直至1年观察终点仍可检测(图1E),表明该载体能够在肺组织内实现长期、稳定的转基因表达。这一长时程表达特性为后续单剂接种即可诱导持久免疫应答奠定了关键基础。
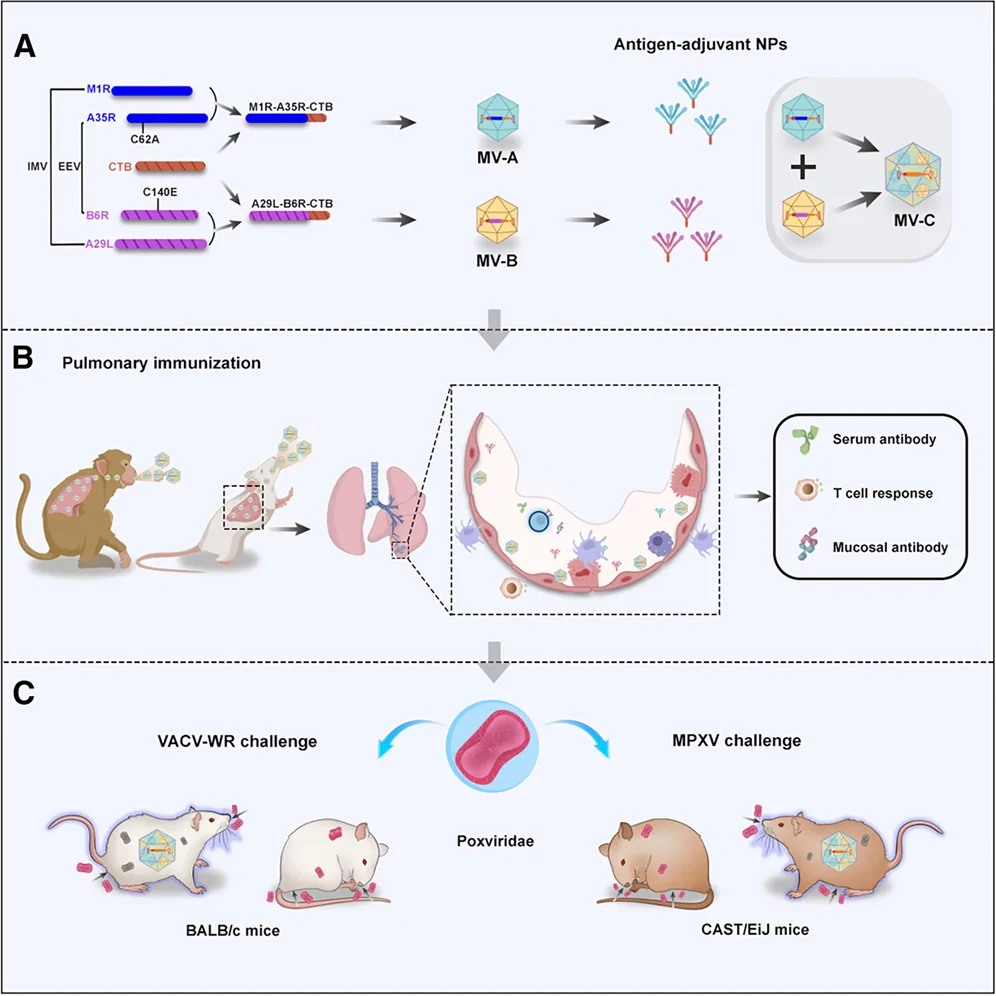
原文图号未提供 这张图(图7)对应本研究的关键结果:研究者构建了两种重组rAAV/DJ载体疫苗:MV-A(编码M1R-A35R-CTB融合蛋白)和MV-B(编码A29L-B6R-CTB融合蛋白),其中M1R、A35R、A29L和B6R均为MPXV的免疫优势抗原,CTB(霍乱毒素B亚单位)作为
板块2|小鼠免疫原性:单剂MV-C诱导持久、高滴度的系统与黏膜抗体反应
结果2|单剂MV-A、MV-B或MV-C诱导血清中高且持久的抗原特异性IgG、IgG1和IgG2a抗体,峰值在42-56天,持续1年
在BALB/c小鼠模型中(每组n=6),作者通过气管内单次滴注给予1×10¹¹ vg的MV-A、MV-B或MV-C(MV-C为MV-A与MV-B等量混合物),并于免疫后第0至365天连续监测血清抗体。ELISA结果显示,三种疫苗均在免疫后14天内即诱导出针对MPXV抗原(M1R、A35R、A29L、B6R)的特异性IgG、IgG1和IgG2a抗体,滴度在42-56天达到峰值,并在长达1年的观察期内未见显著下降,表明单剂免疫即可建立持久的体液免疫记忆。值得注意的是,IgG2a/IgG1比值分析显示MV-B和MV-C诱导了Th1偏向的免疫应答,这通常与更强的抗病毒细胞免疫相关。该结果建立在上一板块疫苗成功构建与体内长效表达的基础上,证实了rAAV/DJ载体平台能够实现单剂接种即产生持续至少1年的系统抗体反应,为后续中和抗体及黏膜免疫评估奠定了基础。
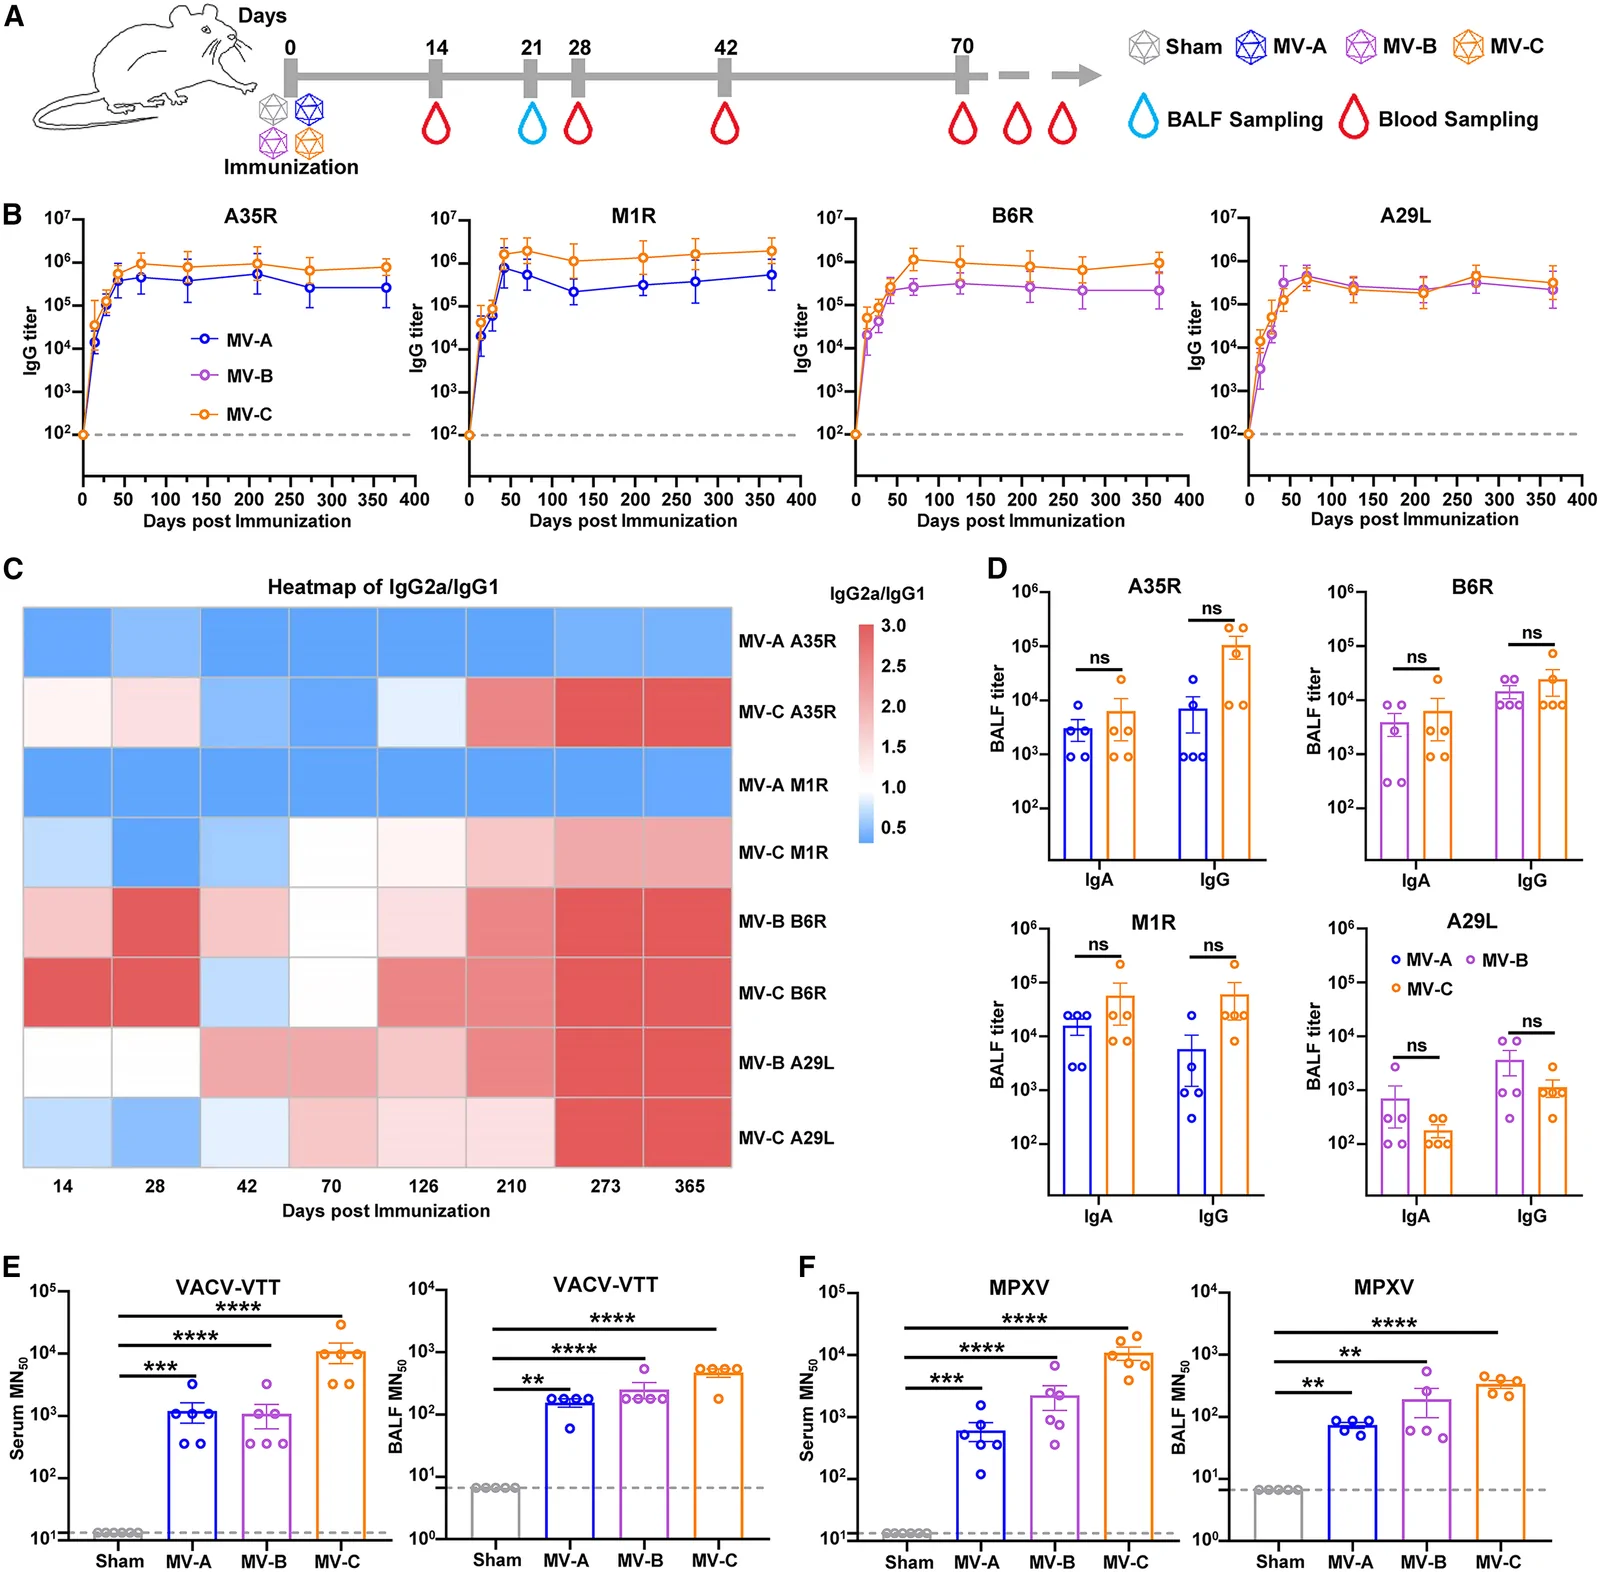
Figure 2 这张图展示了BALB/c小鼠免疫后365天内血清IgG滴度动态(B)、IgG2a/IgG1比值热图(C)、BALF中IgA/IgG滴度(D)以及针对VACV-VTT和MPXV的中和抗体滴度(E、F)。读图时关注B面板的抗体持久性曲线和F面板MV-C组的中和滴度优势,MV-C在血清和BALF中均表现出最高的中和活性。该图直接支撑了结果2和结果3的结论,是证明MV-C免疫原性优势的关键证据。
结果3|MV-C在血清和BALF中诱导针对VACV-VTT、VACV-WR、ECTV和MPXV的最高中和抗体滴度
在确认抗原特异性抗体持久性的基础上,作者进一步评估了中和抗体的广度与强度。在BALB/c小鼠中,于免疫后第70天采集血清、第21天采集支气管肺泡灌洗液(BALF),通过50%微量中和试验(MN50)检测针对多种正痘病毒的中和能力。结果显示,MV-C组在血清和BALF中均诱导出针对VACV-VTT、VACV-WR、ECTV和MPXV的最高中和抗体滴度(每组n=6用于血清、n=5用于BALF),统计学分析采用Kruskal-Wallis检验结合Dunnett多重比较,p值介于<0.01至<0.0001之间。尤其值得关注的是,MV-C在BALF中检测到针对MPXV的中和活性,提示该疫苗通过肺部递送成功诱导了黏膜局部的中和抗体,这对于阻断呼吸道途径的病毒入侵具有关键意义。这一结果与结果2中MV-C最高的总抗体滴度相互印证,表明抗原组合策略(同时靶向IMV和EV抗原)能够产生协同增强的中和广度,为后续攻毒保护实验提供了免疫学基础。
板块3|小鼠细胞免疫:MV-C诱导肺部全面的APC、T细胞和B细胞应答
结果4|MV-C免疫诱导强APC活化、T细胞应答(包括CD8+组织驻留记忆T细胞)和B细胞应答
在BALB/c小鼠中(每组n=4),作者于免疫后第21天通过流式细胞术检测肺组织(含纵隔淋巴结)中的免疫细胞应答。结果显示,与Sham组相比,所有疫苗组均显著上调树突状细胞和巨噬细胞上共刺激分子CD86的表达,其中MV-C组的CD86上调最为显著,表明其能最有效地激活抗原呈递细胞以启动适应性免疫。在T细胞层面,MV-C组CD8+组织驻留记忆T细胞(Trm,CD8+CD44+CD69+CD103+)占CD8+ T细胞的比例在各组中最高,而CD4+ Trm细胞(CD4+CD44+CD69+CD11a+)也同步升高,提示肺部已建立局部记忆性T细胞库。此外,MV-C还诱导了生发中心B细胞(CD19+GL7+IgD−)比例的升高。这些结果共同表明,单剂MV-C经肺部递送能在呼吸道局部激发全面的细胞免疫应答,为后续持久的黏膜保护奠定了基础。
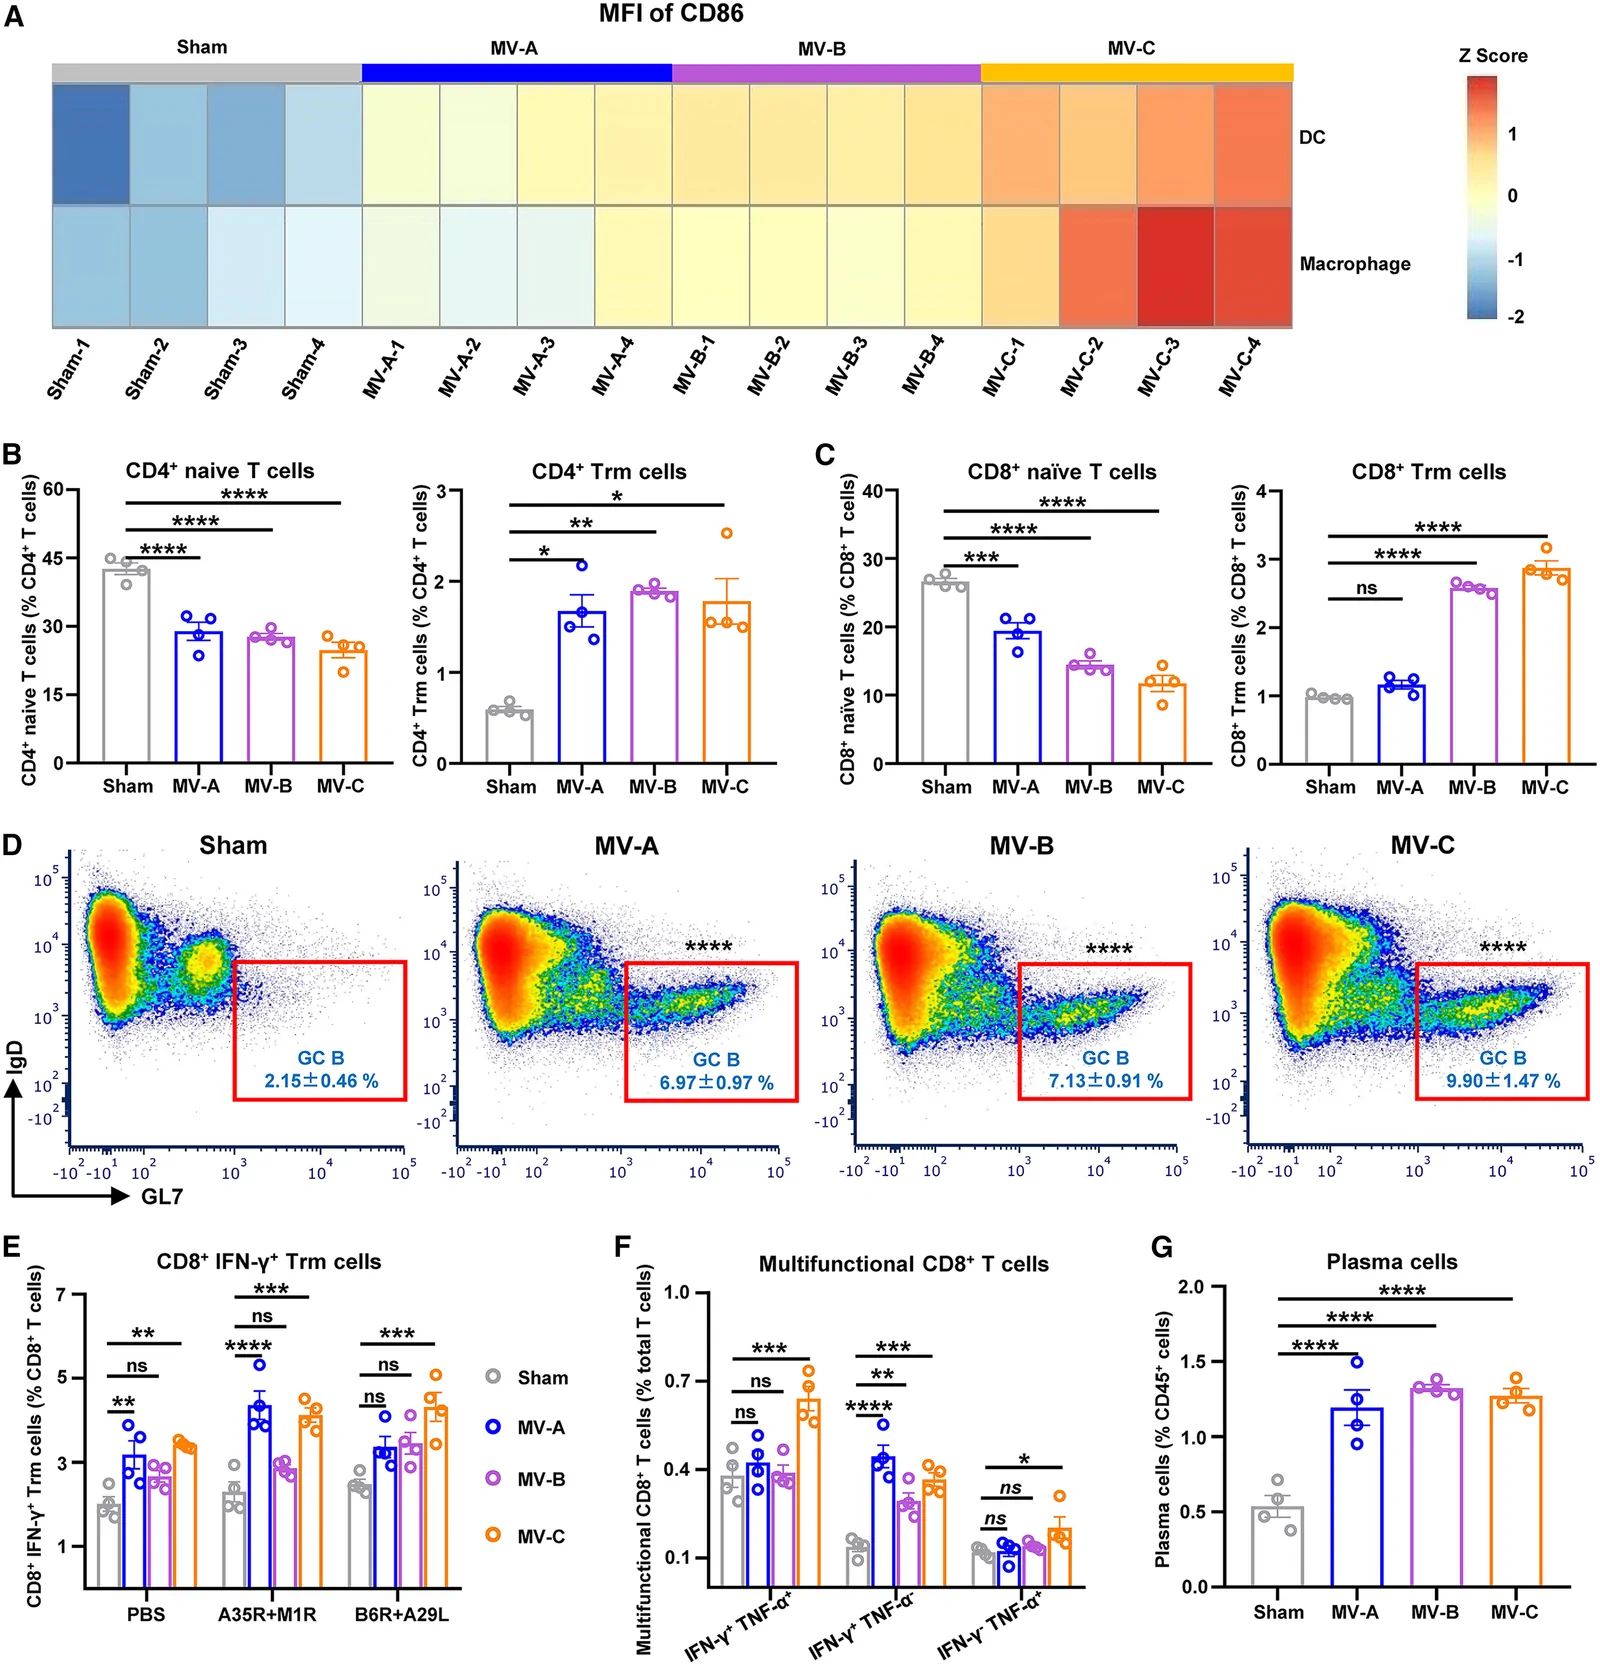
Figure 3 这张图通过流式细胞术展示了免疫后第21天和第70天肺组织中的免疫细胞应答,包括APC活化(CD86表达,A)、CD4+/CD8+组织驻留记忆T细胞(Trm)比例(B、C)、生发中心B细胞(D)、IFN-γ+ Trm细胞(E)、多功能CD8+ T细胞(F)和浆细胞比例(G)。读图时重点关注MV-C组在CD8+ Trm和多功能T细胞上的显著优势,这直接支撑了结果4和结果5关于肺部细胞免疫和记忆性T细胞建立的结论。该图是证明MV-C诱导全面黏膜细胞免疫的核心证据。
结果5|MV-C在免疫后70天诱导IFN-γ分泌的CD8+ Trm细胞和多功能CD8+ T细胞
为评估记忆性T细胞的功能持久性,作者在免疫后第70天(每组n=4)对肺组织中的CD8+ T细胞进行了抗原再刺激分析。结果显示,经MPXV抗原刺激后,MV-C组中分泌IFN-γ的CD8+ Trm细胞比例显著高于Sham组,且MV-C组的多功能CD8+ T细胞(同时分泌IFN-γ和/或TNF-α)比例也明显升高,表明这些Trm细胞不仅存在于肺部,还具备抗原特异性的效应功能。同时,第70天肺组织中浆细胞(CD45+细胞中的浆细胞亚群)比例在MV-C组亦显著增加,与前述生发中心B细胞应答相衔接,说明MV-C诱导的体液免疫应答在肺部持续成熟并维持。这一结果将第21天建立的Trm细胞库与长期功能性的局部免疫监视联系起来,提示MV-C能在呼吸道黏膜建立持久的免疫记忆屏障。
板块4|非人灵长类免疫原性:单剂MV-C在食蟹猴中诱导持久、交叉中和的抗体反应
结果6|在食蟹猴中,单剂MV-C诱导高且持久的血清IgG反应,持续至少120天,并具有针对多种正痘病毒的交叉中和活性
在小鼠实验中确认MV-C为最优候选疫苗后,作者进一步在3只食蟹猴(6-7岁雌性)中评估其临床转化潜力,通过气管内途径单次给予1×10¹² vg的MV-C,并在免疫后第0至120天动态监测抗体反应。ELISA结果显示,血清中针对MPXV抗原(M1R、A35R、A29L、B6R)的特异性IgG抗体在免疫后14天内即显著升高,且在整个120天观察期内维持高水平,未见明显衰减趋势,提示该疫苗在灵长类中同样能建立持久的系统免疫记忆。在第42天的血清微量中和试验(MN50)中,作者检测到针对VACV-VTT、VACV-WR、ECTV及MPXV四种正痘病毒的交叉中和活性,且对MPXV的中和滴度最高,表明MV-C诱导的抗体不仅具有广谱性,且对目标病原体具有更强的中和能力。此外,第21天支气管肺泡灌洗液(BALF)中检测到针对MPXV抗原的IgA和IgG抗体,且BALF中的MN50滴度同样可检测到,证实该疫苗经肺递送后能有效激发黏膜局部抗体反应。这一结果将前文在小鼠中建立的免疫原性证据拓展至非人灵长类,为后续保护性效力研究及临床转化提供了关键支撑。
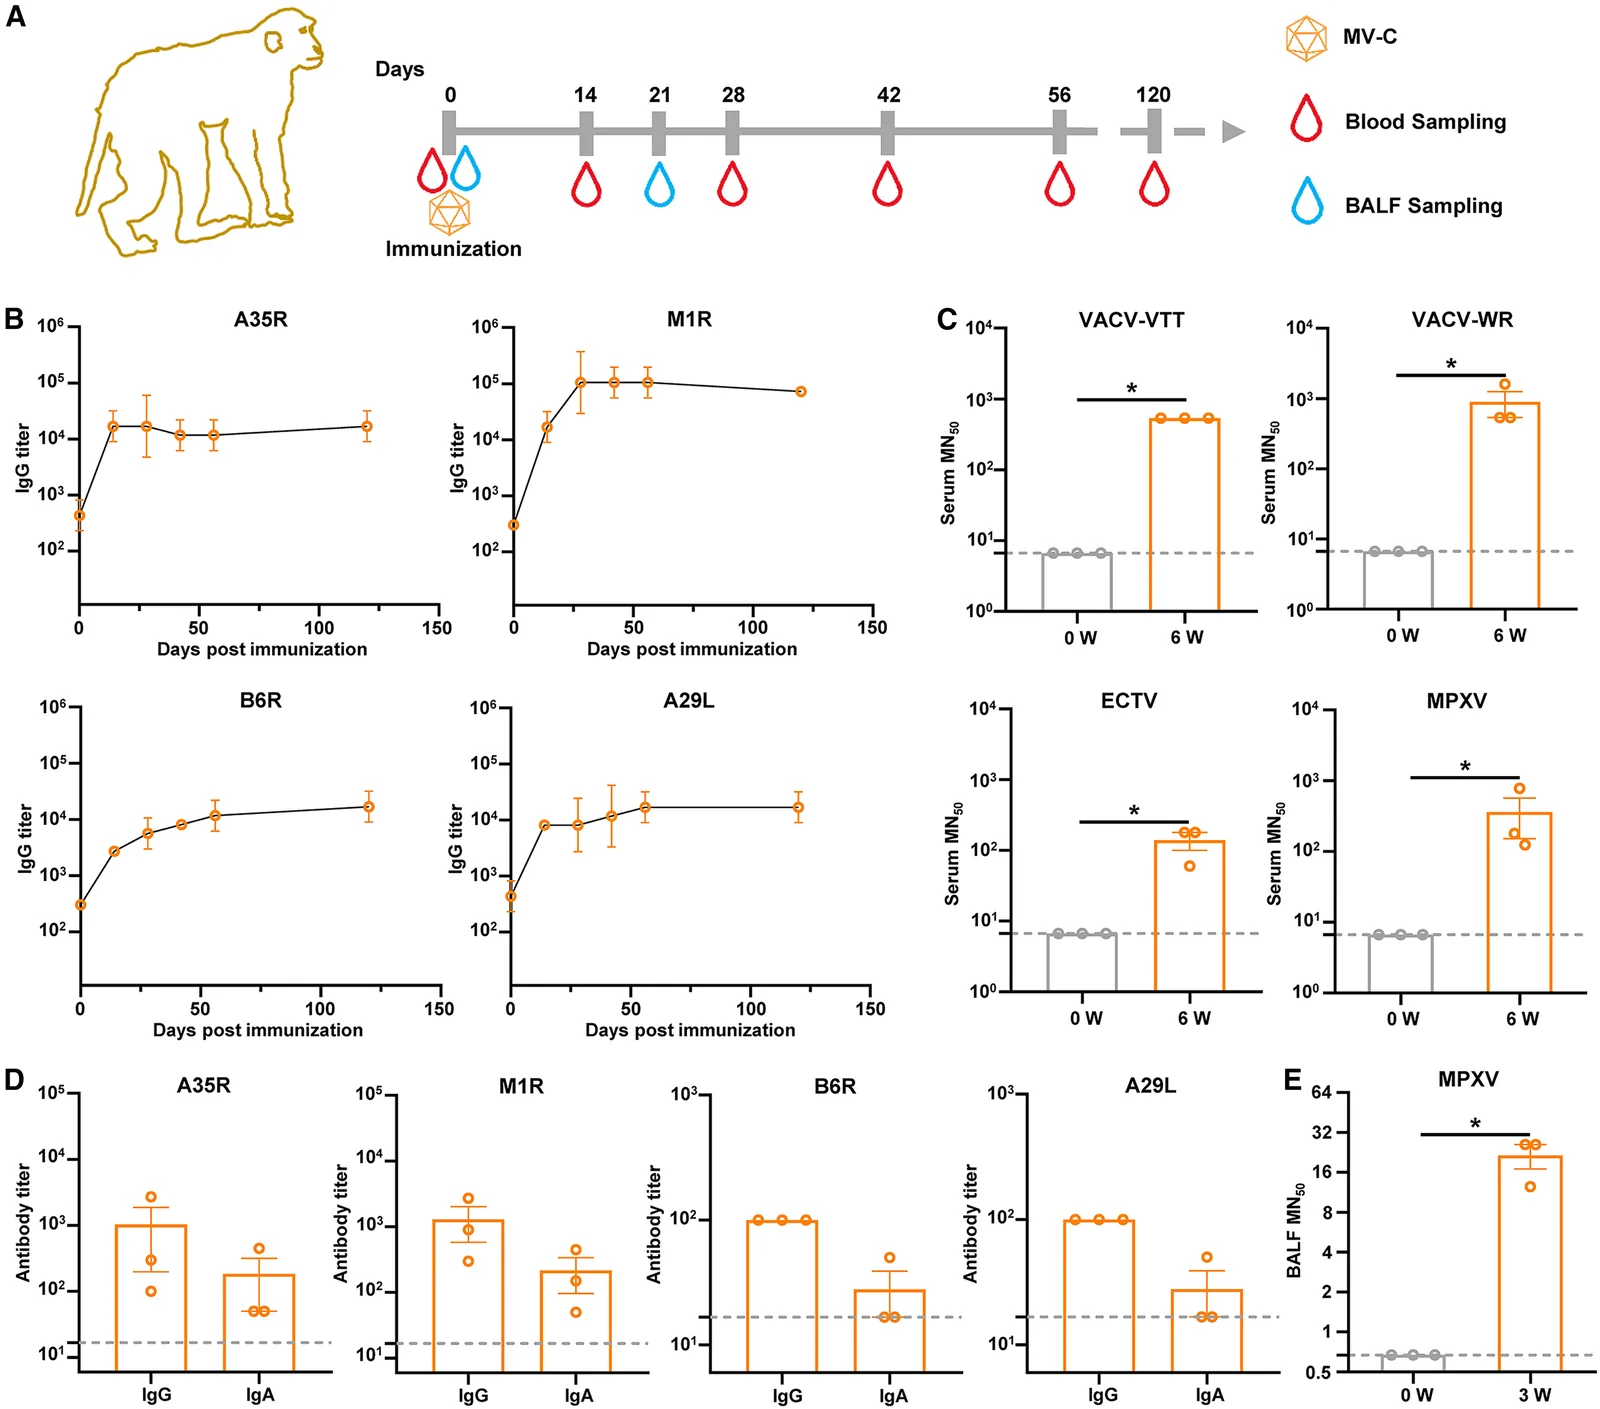
Figure 4 这张图展示了3只食蟹猴经单剂MV-C免疫后120天内的血清IgG动态(B)、第42天针对四种正痘病毒的MN50中和滴度(C)、第21天BALF中IgA/IgG滴度(D)和针对MPXV的中和活性(E)。读图时关注B面板的抗体持久性和C面板对MPXV的最高中和滴度,这直接支撑了结果6关于非人灵长类免疫原性的结论。该图将疫苗的免疫原性证据从小鼠拓展至灵长类,是临床转化潜力的关键支撑。
板块5|保护效力:MV-C保护小鼠免受VACV-WR和MPXV攻击
结果7|在BALB/c小鼠中,MV-C疫苗接种保护免受鼻内VACV-WR攻击,体重减轻最小,肺中检测不到感染性病毒
在BALB/c小鼠模型中,作者首先评估了单剂MV-C对鼻内VACV-WR攻毒的保护效力。免疫后5周,小鼠接受1×10⁵ PFU VACV-WR鼻内攻毒,结果显示MV-C组仅出现一过性体重下降后迅速恢复,而Sham组体重持续下降(n=5)。攻毒后6天(dpi),通过qPCR检测肺组织病毒基因组拷贝数,MV-C组显著低于Sham组;更为关键的是,通过蚀斑试验检测感染性病毒载量,MV-C组肺中感染性VACV-WR完全检测不到(低于检测限),而Sham组病毒载量高企。这一结果直接证明了MV-C诱导的免疫应答能够在呼吸道这一主要感染门户有效清除病毒,与前文观察到的MV-C诱导高水平的黏膜IgA、IgG及肺部CD8⁺组织驻留记忆T细胞(Trm)相呼应,说明黏膜免疫在抗正痘病毒保护中发挥关键作用。
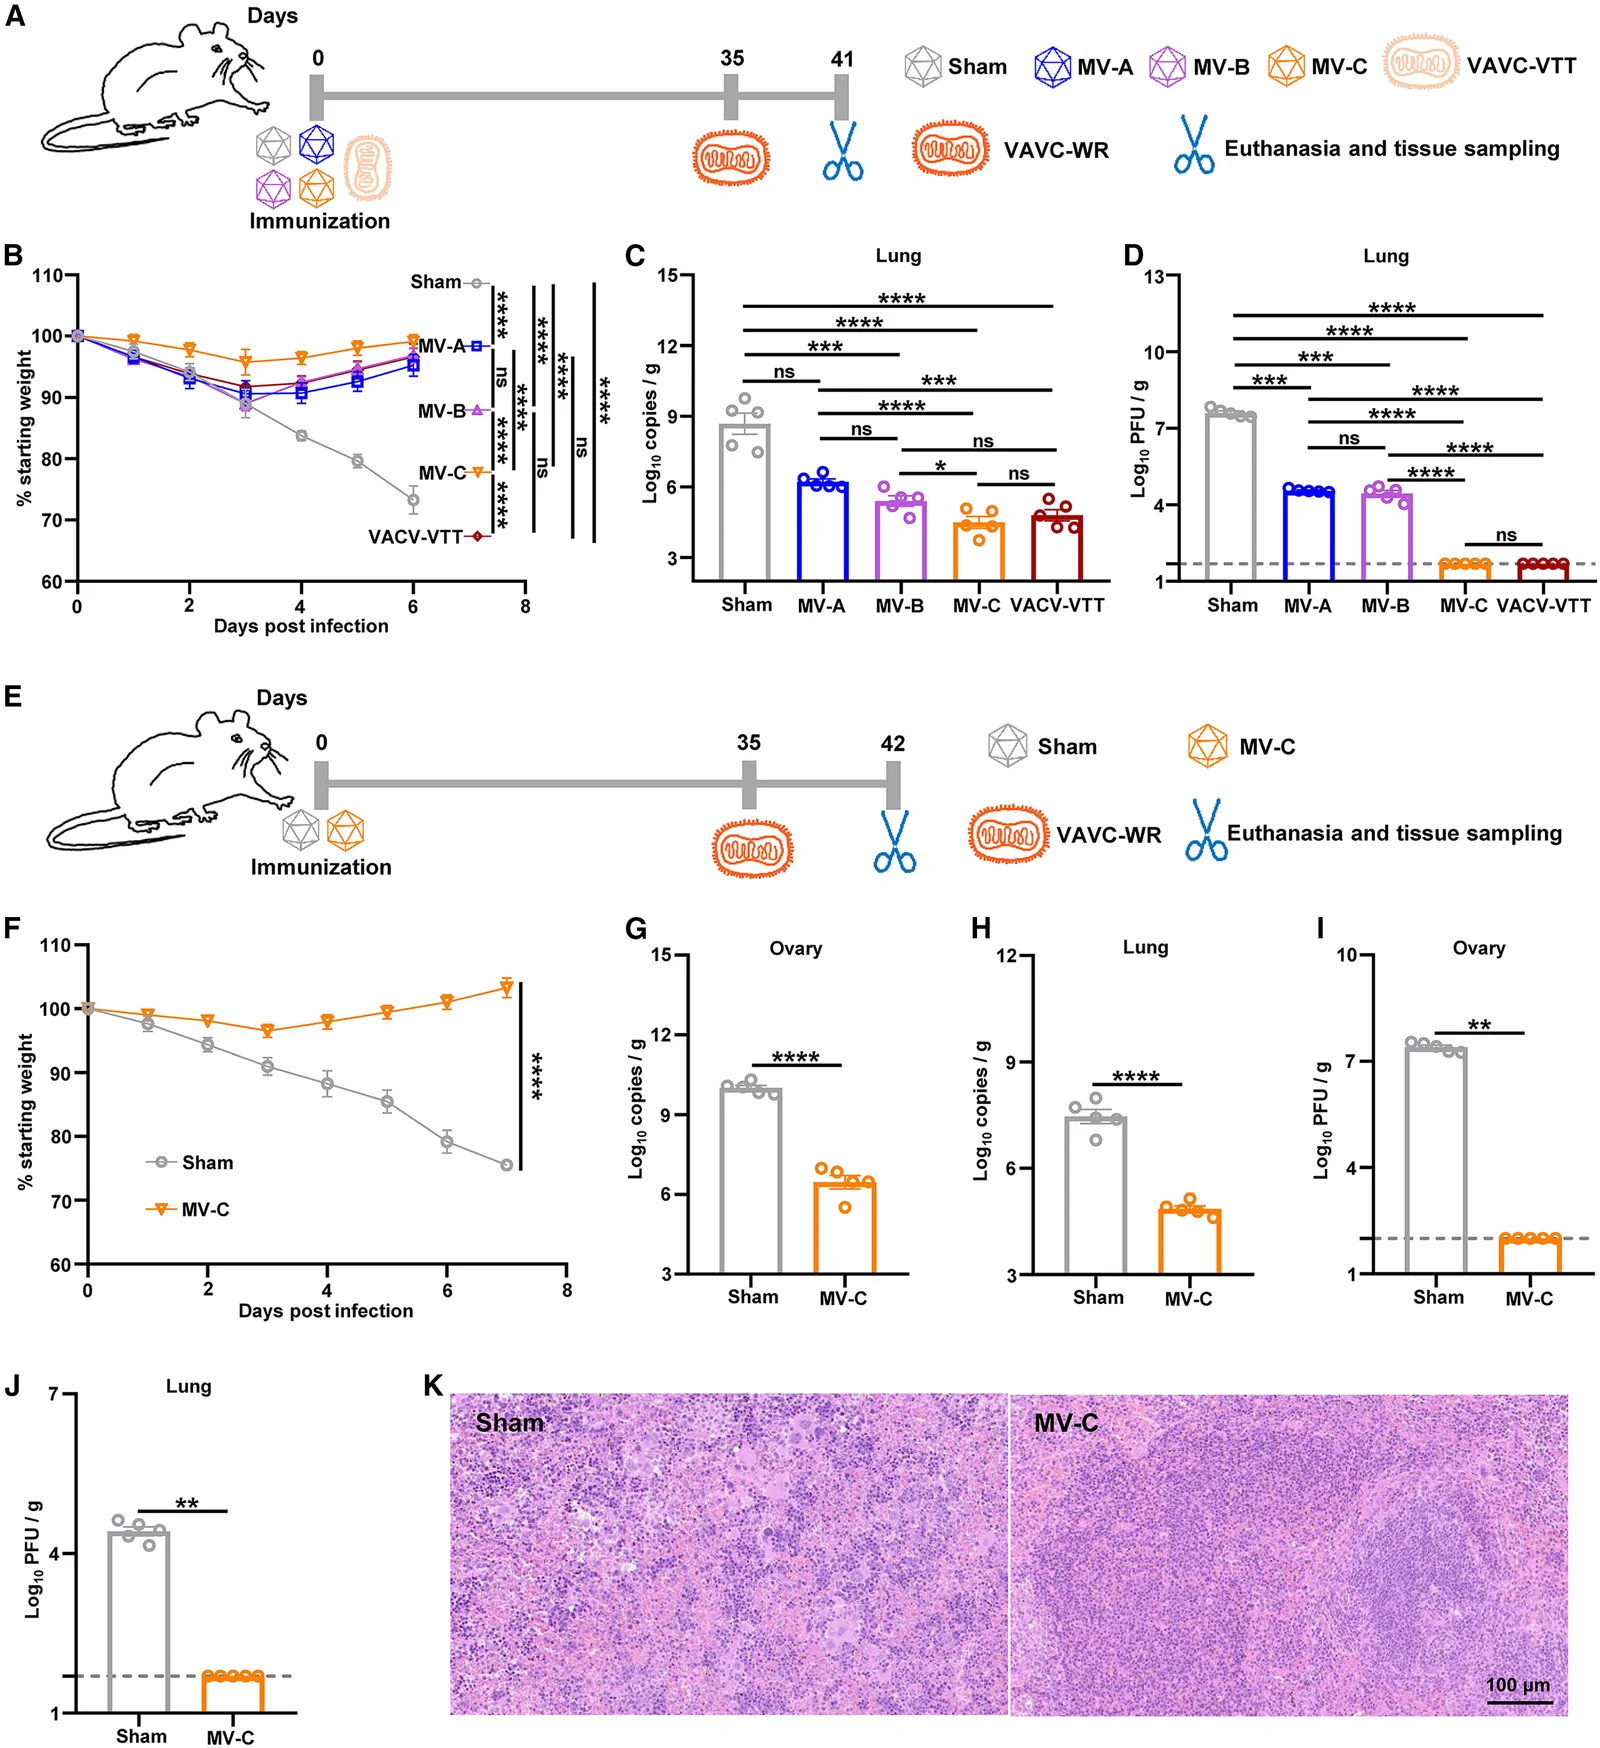
Figure 5 这张图展示了MV-C对鼻内(A-D)和阴道(E-K)VACV-WR攻毒的保护效力,包括体重变化(B、F)、肺和卵巢的病毒基因组拷贝数(C、G、H)、感染性病毒载量(D、I、J)以及脾脏组织病理(K)。读图时重点关注MV-C组在感染性病毒载量上低于检测限的关键结果,这直接支撑了结果7和结果8关于呼吸道和生殖道双重保护的结论。该图是证明MV-C保护效力的直接功能证据。
结果8|MV-C疫苗接种保护免受阴道VACV-WR攻击,卵巢和肺中检测不到感染性病毒
鉴于猴痘病毒可通过生殖道传播,作者进一步评估了MV-C对阴道途径VACV-WR攻毒的保护效力。在BALB/c小鼠中,免疫后5周给予2×10⁵ PFU VACV-WR阴道攻毒(两次剂量),结果显示MV-C组小鼠体重维持稳定,而对照组出现明显体重下降(n=5)。攻毒后7 dpi,通过qPCR检测卵巢和肺组织的病毒基因组拷贝数,MV-C组在两个组织中均显著低于对照组;通过蚀斑试验检测感染性病毒载量,MV-C组卵巢和肺中的感染性VACV-WR均低于检测限,实现了完全清除。此外,脾脏组织病理学分析显示MV-C组未见明显病变,而对照组脾脏出现显著病理损伤。这一结果与结果7共同表明,MV-C不仅能保护呼吸道,还能保护生殖道这一正痘病毒的另一重要入侵途径,印证了MV-C诱导的全身性免疫应答在多个黏膜部位均发挥保护作用,为疫苗应对不同传播途径提供了实验依据。
结果9|在CAST/EiJ小鼠中,MV-C免疫(肺部或肌肉)提供针对MPXV clade IIb双途径攻毒的灭菌免疫
为验证疫苗对真正猴痘病毒(MPXV)的保护效力,作者选用了对MPXV易感的CAST/EiJ小鼠品系。免疫后5周,小鼠接受3×10⁵ PFU MPXV clade IIb攻毒(鼻内6×10⁴ PFU + 腹腔2.4×10⁵ PFU双途径)。结果显示,MV-C肺部免疫组和MV-C肌肉免疫组(MV-C-i.m.)在攻毒后均未出现明显体重下降,而Sham组和MV-A组因腹腔积液反而体重增加(n=6–9)。攻毒后6 dpi,通过qPCR检测肺和卵巢病毒基因组拷贝数,MV-C和MV-C-i.m.组肺中病毒基因组完全检测不到;通过TCID50试验检测感染性病毒载量,两组在肺和卵巢中均低于检测限,实现了灭菌免疫(sterilizing immunity)。这一结果将保护效力从VACV-WR延伸至真正的MPXV,且证明无论肺部吸入还是肌肉注射给药,MV-C均能诱导足以完全清除MPXV的免疫应答,为该疫苗的临床给药途径选择提供了灵活性。
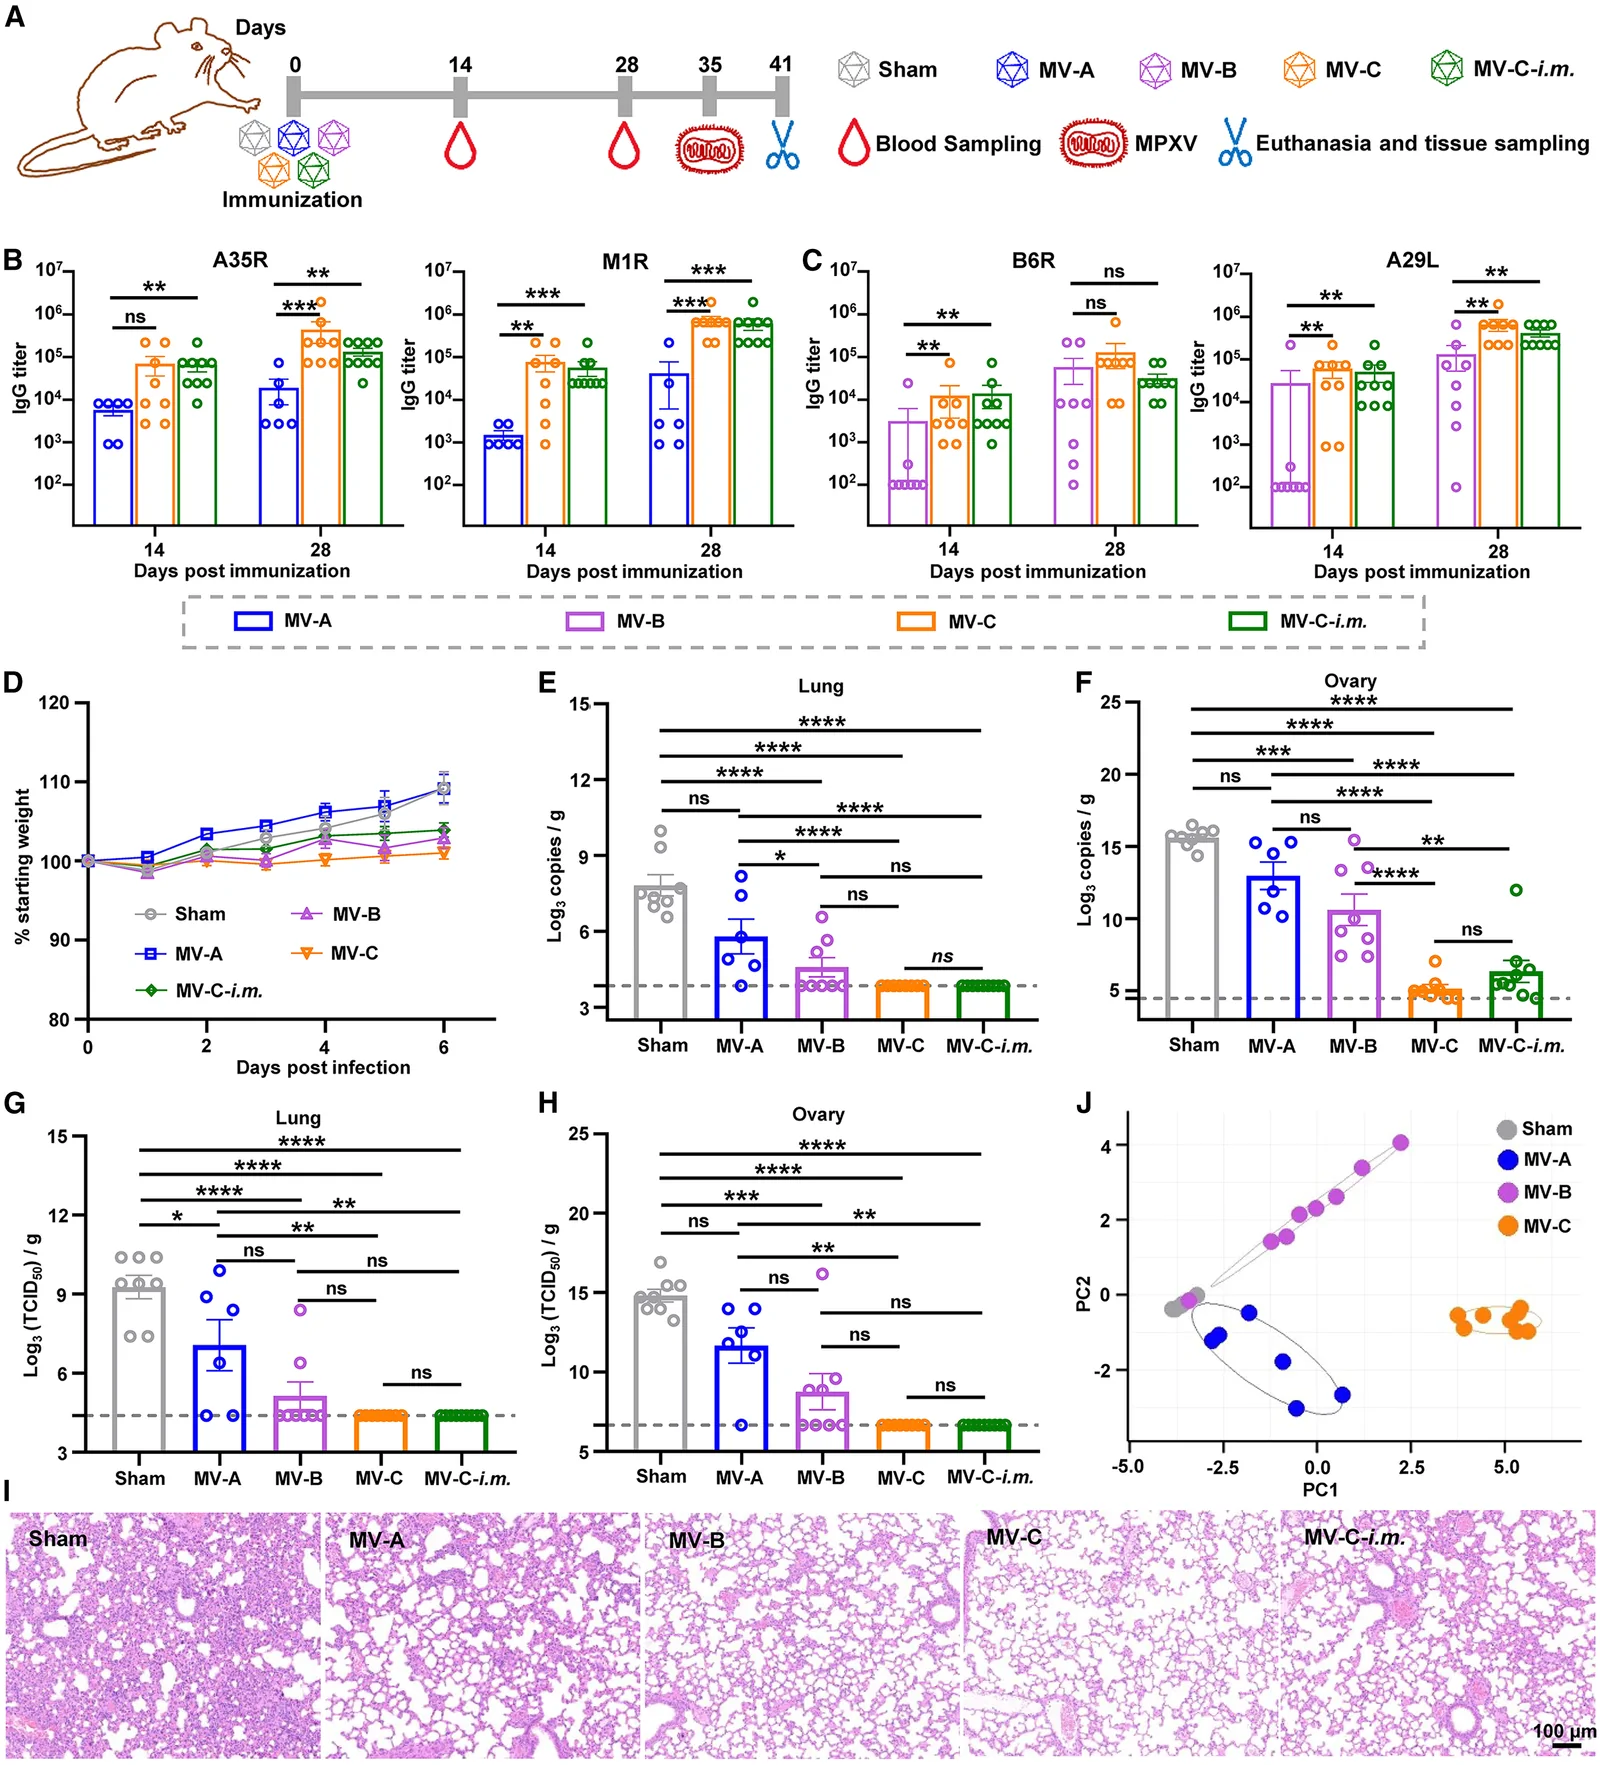
Figure 6 这张图展示了MV-C对MPXV clade IIb双途径攻毒的保护效力,包括血清IgG滴度(B、C)、体重变化(D)、肺和卵巢的病毒基因组拷贝数(E、F)、感染性病毒载量(G、H)、肺组织病理(I)以及PCA分析(J)。读图时重点关注MV-C和MV-C-i.m.组在肺和卵巢中病毒完全检测不到的灭菌免疫结果,以及J面板中MV-C形成的独立聚类。该图直接支撑了结果9和结果10,是证明MV-C对真正MPXV提供灭菌免疫和IMV抗原作为保护预测因子的核心证据。
结果10|针对IMV抗原M1R和A29L的抗体被确定为MPXV保护的最重要预测因子
为阐明MV-C保护效力的免疫相关因素,作者对CAST/EiJ小鼠的抗体应答与健康状态进行了随机森林分析。结果显示,针对IMV(细胞内成熟病毒体)抗原M1R和A29L的抗体被排序为预测小鼠健康状态(健康/轻度/中度/重度感染)的最重要变量,排名高于针对EV(细胞外包膜病毒)抗原A35R和B6R的抗体。这一发现具有重要的疫苗设计意义:尽管MV-C包含IMV和EV两类抗原,但IMV抗原(尤其是M1R和A29L)在介导保护性免疫中起主导作用。主成分分析(PCA)进一步显示,MV-C组在抗体和病毒载量谱上形成独立聚类,与Sham、MV-A、MV-B组明显分离,表明MV-C诱导的免疫应答模式在质量上优于单价疫苗。这一结果不仅解释了MV-C为何具有最强保护效力,也为未来正痘病毒疫苗的抗原优化提供了关键指导——IMV抗原应作为疫苗设计的核心组分。
04 深度解读与讨论
【解读观点】本研究的核心创新在于将rAAV/DJ载体的长效表达特性与CTB黏膜佐剂相结合,实现了单剂吸入免疫。rAAV/DJ血清型具有高效的肺上皮转导能力,而CTB能够增强抗原向黏膜相关淋巴组织的递送,这种组合策略在疫苗设计中具有较高的转化潜力。
【解读观点】研究通过随机森林分析发现,针对IMV(细胞内成熟病毒)抗原M1R和A29L的抗体是预测保护效果的最重要因素,这一发现挑战了传统上以EV(细胞外包膜病毒)抗原(如A35R、B6R)为中心的疫苗设计思路 [Results]。提示未来猴痘疫苗的抗原选择可能需要更加关注IMV抗原的免疫原性。
【解读观点】在CAST/EiJ小鼠模型中,MV-C实现了“灭菌性免疫”(sterilizing immunity),即肺和卵巢中均检测不到病毒基因组和感染性病毒 [Results]。这一结果在动物模型中展示了该疫苗平台对MPXV的强效保护潜力,但其在人类中的效果仍需谨慎解读。
05 局限与展望
本研究存在以下局限性:首先,保护效力仅在啮齿动物(BALB/c和CAST/EiJ小鼠)中评估,尚未在非人灵长类中进行攻毒实验 [Discussion]。其次,攻毒实验使用的是MPXV clade IIb,对于毒力更强的clade Ib的效力尚待确定。此外,直肠暴露途径未纳入测试,超过1年的长期保护效果也未评估。
在临床转化方面,rAAV载体在人体中可能诱导预存免疫或免疫耐受,这一问题在研究中未被充分讨论。未来需要在非人灵长类中开展攻毒保护实验,并评估重复给药的安全性,以推动该平台向临床阶段发展。
06 科研思路启发
本研究为疫苗设计和免疫学评价提供了可借鉴的科研范式:
-
载体平台选择的创新性:利用rAAV/DJ血清型的肺嗜性实现吸入式给药,避免了传统肌肉注射的局限,这一思路可推广至其他呼吸道病原体(如流感、RSV)的疫苗设计。
-
抗原组合的系统优化:通过将IMV和EV抗原融合至同一载体,并利用CTB增强黏膜免疫,展示了“抗原+佐剂”融合蛋白设计的可行性。研究者可借鉴这一策略,在自身课题中探索不同抗原组合的协同效应。
-
多层次免疫评估体系:从血清抗体(IgG/IgA亚型)、中和抗体(MN50)、细胞免疫(CD8+ Trm、多功能T细胞)、B细胞应答(GC B细胞、浆细胞)到单细胞测序(scRNA-seq/scBCR-seq),构建了全面的免疫原性评价框架。
-
预测性生物标志物分析:利用随机森林算法筛选保护性免疫相关抗体,为疫苗效果评价提供了数据驱动的生物标志物发现方法,这一分析思路可应用于其他疫苗研究。
金句
单剂吸入式基因载体疫苗,在小鼠肺中持续表达抗原长达一年,并在猕猴中诱导广谱正痘病毒中和抗体——这一“长效表达+黏膜免疫”的设计思路,为无针疫苗平台提供了新的可能性。